https://www.youtube.com/watch?v=oBL0OC3IavI
https://www.youtube.com/watch?v=rqDGlChGZPk
älkimmäisessä on pääpiirteet glykogeenin synteesistä ja hajoamisesta.
lördag 11 oktober 2014

Glykogeenisyntaasi ja glykogeniini luomassa glykogeeniä. Animaatio gltkogeenin synteesistä
Glykogeenisyntaasi on entsyymi, joka osallistuu glykogeenin biosynteesiin. Entsyymi katalysoi UDP-glukoosimolekyylin liittämistä glykogeeniketjuun α-1,4-glykosidisidoksella. Samalla vapautuu ADP-molekyyli. Glykogeenisyntaasin EC-numero on EC 2.4.1.11 ja CAS-numero 9014-56-6.[1][2]
Jotta glykogeenisyntaasi voisi lisätä glukoosiyksiköitä muodostaakseen polymeerin vaatii se primeerikseen polysakkaridin, joka sisältää vähintään kuusi glukoosiyksikköä. Tämän saa aikaiseksi glykogeniinientsyymi.
Tärkeä animaalinen varastosokeri glykogeeni on glukoosin polymeeri ja se toimii nopeasti saatavilla olevan energian lähteenä.
Glykogeenin synteesi alkaa siten, että glykogeniini- niminen peptidi autoglukosyloituu. Glykogeenisyntaasi pystyy vain lisäämään siihen alkupolysakkaridiketjuun (glykaaniprimeeriin) sokeria.
Glykogeniinistä on useita isoentsyymejä, joista yleisin on glykogeniini 1 (GYG1) , joka koostuu kahdesta molekyylimassaltaan 37 kDa samanlaisesta alayksiköstä. Tämän isoentsyymin lisäksi kädellisten maksassa esiintyy glykogeniini 2 (GYG2) , joka koostuu kahdesta molekyylimassaltaan 66 kDa olevasta samanlaisesta alayksiköstä. Glykogeniinin kumpikin alayksikkö on katalyyttisesti aktiivinen. Entsyymi siirtää glukoosiyksiköitä UDP-glukoosilta ja liittää ne itseensä tiettyjen tyrosiiniaminohappojen sivuketjuihin muodostaen glykaaniprimeerin. Tyypillisesti glukoosiyksiköitä on tässä primeerissä 5–13. Glykogeniini ei muodosta tätä pidempiä polymeerejä vaan glykogeenin synteesiä jatkaa se toinen entsyymi glykogeenisyntaasi ja glykogeniini muodostaa glykogeenipolymeerin proteiiniytimen. Glykogeniini vaatii toimiakseen mangaani-ioneja. Haaran muodostuksessa toimii branching enzyme.
https://www.youtube.com/watch?v=9doz-9w1RtI

Glykogeenisyntaasista on kaksi eri muotoa, aktiivinen a-muoto ja inaktiivisempi fosforyloitu b-muoto, jonka eräisiin seriiniaminohappoihin on liittynyt fosforyyliryhmä.
On useita kinaaseja, jotka fosforyloivat a-muodon b-muodoksi, tällaisia ovat muun muassa glykogeenisyntaasille spesifiset proteiinikinaasi A eli cAMP-riippuvainen proteiinikinaasi ja glykogeenisyntaasikinaasi-3 sekä useampia proteiineja fosforyloiva kaseiinikinaasi 2.
Glykogeenisyntaasikinaasi-3 on entsyymi, joka vastaa seriinin ja treoniinin fosfaattiryhmän kinaasista
GSK-3 paljastui vuonna 2006 Alzheimerin taudin metaboliseksi tekijäksi - GSK-3:n aktivaatio edeltää hermosolujen kuolemaa ja muistihäiriöitä aiheuttavan amyloidiplakin muodostumista.
Nisäkkäillä GSK-3-entsyymin koodaavat perimässä GSK3 Alfa ja GSK3 Beeta -geenit.
 Figure 1. Glycogen synthase kinase-3 regulates Wnt and Akt-dependent signaling.
Growth factors, including neurotrophins, activate Akt, which
phosphorylates, and inhibits GSK-3 allowing activation of downstream
effectors to promote cell survival. Both Akt and GSK-3 have multiple
targets not shown here for the sake of clarity. Wnts inhibit GSK-3
within the Axin complex stabilizing β-catenin, which activates Wnt
target genes, and promotes neurogenesis. Axin-associated GSK-3 is not
regulated by N-terminal phosphorylation and is thus distinct from
Akt-regulated GSK-3, and both pools are inhibited by lithium. Thus
lithium may stimulate neurogenesis by activating Wnt/β-catenin signaling
and enhancing cell survival.
Proteiinifosfataasi 1 -entsyymi aktivoi glykogeenisyntaasia poistamalla fosfaattiryhmiä entsyymistä.
Se aktivoi glykogeenin synteesiä defosforyloimalla glykogeenisyntaasiin liitettyjä fosfaattiryhmiä ja täten muuttaen sen inaktiivisesta b-muodosta aktiivisempaan a-muotoon.
Insuliini on glykogeenisyntaasikinaasin inhibiittori ja siten aktivoi glykogeenisyntaasin toimintaa. Glykogeenisyntaasin ollessa fosforyloituna myös glukoosi-6-fosfaatti ja ATP kasvattavat sen katalyyttistä aktiivisuutta.
Glykogeenisyntaasin puutos on harvinainen sairaus. Sen seurauksena potilailla on hypoglykemia, johon voi liittyä myös asiduriaa.
Jotta glykogeenisyntaasi voisi lisätä glukoosiyksiköitä muodostaakseen polymeerin vaatii se primeerikseen polysakkaridin, joka sisältää vähintään kuusi glukoosiyksikköä. Tämän saa aikaiseksi glykogeniinientsyymi.
Tärkeä animaalinen varastosokeri glykogeeni on glukoosin polymeeri ja se toimii nopeasti saatavilla olevan energian lähteenä.
Glykogeenin synteesi alkaa siten, että glykogeniini- niminen peptidi autoglukosyloituu. Glykogeenisyntaasi pystyy vain lisäämään siihen alkupolysakkaridiketjuun (glykaaniprimeeriin) sokeria.
Glykogeniinistä on useita isoentsyymejä, joista yleisin on glykogeniini 1 (GYG1) , joka koostuu kahdesta molekyylimassaltaan 37 kDa samanlaisesta alayksiköstä. Tämän isoentsyymin lisäksi kädellisten maksassa esiintyy glykogeniini 2 (GYG2) , joka koostuu kahdesta molekyylimassaltaan 66 kDa olevasta samanlaisesta alayksiköstä. Glykogeniinin kumpikin alayksikkö on katalyyttisesti aktiivinen. Entsyymi siirtää glukoosiyksiköitä UDP-glukoosilta ja liittää ne itseensä tiettyjen tyrosiiniaminohappojen sivuketjuihin muodostaen glykaaniprimeerin. Tyypillisesti glukoosiyksiköitä on tässä primeerissä 5–13. Glykogeniini ei muodosta tätä pidempiä polymeerejä vaan glykogeenin synteesiä jatkaa se toinen entsyymi glykogeenisyntaasi ja glykogeniini muodostaa glykogeenipolymeerin proteiiniytimen. Glykogeniini vaatii toimiakseen mangaani-ioneja. Haaran muodostuksessa toimii branching enzyme.
https://www.youtube.com/watch?v=9doz-9w1RtI
Glykogeenisyntaasista on kaksi eri muotoa, aktiivinen a-muoto ja inaktiivisempi fosforyloitu b-muoto, jonka eräisiin seriiniaminohappoihin on liittynyt fosforyyliryhmä.
On useita kinaaseja, jotka fosforyloivat a-muodon b-muodoksi, tällaisia ovat muun muassa glykogeenisyntaasille spesifiset proteiinikinaasi A eli cAMP-riippuvainen proteiinikinaasi ja glykogeenisyntaasikinaasi-3 sekä useampia proteiineja fosforyloiva kaseiinikinaasi 2.
Glykogeenisyntaasikinaasi-3 on entsyymi, joka vastaa seriinin ja treoniinin fosfaattiryhmän kinaasista
GSK-3 paljastui vuonna 2006 Alzheimerin taudin metaboliseksi tekijäksi - GSK-3:n aktivaatio edeltää hermosolujen kuolemaa ja muistihäiriöitä aiheuttavan amyloidiplakin muodostumista.
Nisäkkäillä GSK-3-entsyymin koodaavat perimässä GSK3 Alfa ja GSK3 Beeta -geenit.
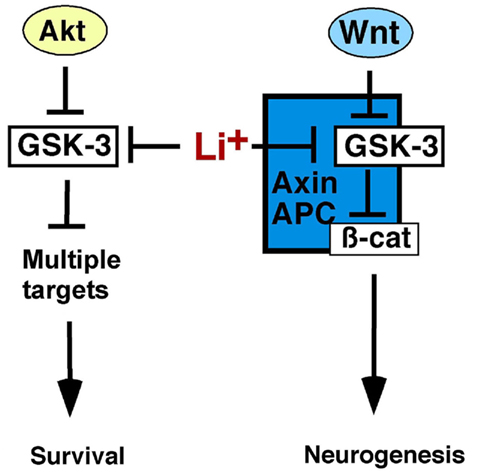 Figure 1. Glycogen synthase kinase-3 regulates Wnt and Akt-dependent signaling.
Growth factors, including neurotrophins, activate Akt, which
phosphorylates, and inhibits GSK-3 allowing activation of downstream
effectors to promote cell survival. Both Akt and GSK-3 have multiple
targets not shown here for the sake of clarity. Wnts inhibit GSK-3
within the Axin complex stabilizing β-catenin, which activates Wnt
target genes, and promotes neurogenesis. Axin-associated GSK-3 is not
regulated by N-terminal phosphorylation and is thus distinct from
Akt-regulated GSK-3, and both pools are inhibited by lithium. Thus
lithium may stimulate neurogenesis by activating Wnt/β-catenin signaling
and enhancing cell survival.
Proteiinifosfataasi 1 -entsyymi aktivoi glykogeenisyntaasia poistamalla fosfaattiryhmiä entsyymistä.
Se aktivoi glykogeenin synteesiä defosforyloimalla glykogeenisyntaasiin liitettyjä fosfaattiryhmiä ja täten muuttaen sen inaktiivisesta b-muodosta aktiivisempaan a-muotoon.
Insuliini on glykogeenisyntaasikinaasin inhibiittori ja siten aktivoi glykogeenisyntaasin toimintaa. Glykogeenisyntaasin ollessa fosforyloituna myös glukoosi-6-fosfaatti ja ATP kasvattavat sen katalyyttistä aktiivisuutta.
Glykogeenisyntaasin puutos on harvinainen sairaus. Sen seurauksena potilailla on hypoglykemia, johon voi liittyä myös asiduriaa.
måndag 20 januari 2014
Uusi väitöskirja glykogeeniaineenvaihdunnan alalta
Löysin tämän abstraktin viime kertaa kirjastossa käydessäni.
JOHANNA NILSSON. Two new disorders of glycogenmetabolism.
Institute of Biomedicine, Dep. of pathology, University of Gothenburg.
ISBN 978-91-628-8854-1.
Väitöstilaisuus on vielä edessäpäin.
http://www.gu.se/omuniversitetet/aktuellt/kalendarium/eventdetalj/?eventId=1784826828
Selvitän tähän tiivistelmää suomenkielellä.
On syytä mainita tähän työn osat, koska ne ovat varmaan PUB MED hakulaitteella löydettävissä.
I. Moslemi AR, Lindberg C, Nilsson J, Tajsharagi H, Andersson B, Oldfors A. Glycogenin-1 deficiency and inactivated priming of glycogen synthesis.
N Engl J Med. 2010 Apr 1; 362(13): 1203-10.
2. Nilsson J, Halim A, Moslemi AR, Pedersen A, Nilsson J, LArson G, Oldfors A. Molecular pathogenesis of a new glycogenosis caused by a glycogenin-1 mutation. Biochim Biophys Acta. 2012 Apr; 1822(4): 493-9.
3. Nilsson J, Halim A, Larsson E, Moslemi AR, Oldfors A, Larson G, Nislsson J.
LC_MS/MS characterization of combined glycogenin-1 and glyogenin-2 enzymatic acxtivities reveals their self-glucosylation preferences. Biochim Biophys Acta. 2013 Nov.
4. Nilsson J, Schoser B, Laforet P, Kalev O, Lindberg C, Romero NB, Lopez MD, Akman HO, Wahbi K, Iglseder S, Eggers C, Engel AG, Dimauro S, Oldfors A. Polyglucosan body myopathy caused by defective ubiquitin ligase RBCK1. Ann neurol 2013 Jun 24.
Suomennosta sikäli miten nyt asian pystyn parhaiten ymmärtämään.
On olemassa kaksi glykogeniini-geeniä. Ne ovat geeni GYG1 ja geeni GYG2 ja ne koodaavat kahta isoformia. Ensinmainittu geeni koodaa glykogeniini-1 muotoa ja jälkimmäinen glykogeniini-2 muotoa. Kehossa on yleisesti glykogeniini-1 muotoa, mutta glykogeniini-2- muotoa esiintyy pääasiassa maksassa sekä sitä on myös sydämessä.
--/ KOMMENTTINI: Tässä täytyy välillä etsiä geenitiedot:
http://www.genecards.org/cgi-bin/carddisp.pl?gene=GYG2
Tähän geeniin GYG2 assosioituvat sekä glykogeenin varastoitumishäiriö tyyppi 0 että glykogeenin varastoitumistauti
Engl. sitaatti:
Entrez Gene summary for GYG2 Gene:
..
Tätä defektiä pystyi kompensoimaan intermolekulaarisella glykosylaatiolla aktiivi glykogeniini-1, mutta glykogeniini-2 ei pystynyt kompensoimaan autoglykosylaation alkutapahtuman poisjäämistä. .
Transkriptomi ja western blog- analyysit viittasivat siihen, että glykogeniini-2 esiintyy pääasiassa maksassa ja rasvakudoksessa ja vain vähäasteisesti sydämessä ja lihaksissa
Samanaikaisesti expressoituneista glykogeniniini-1 ja glykogeniini-2 glykopeptideistä hankittujen tietojen automaattista analyysia soveltamalla osoitettiin, että glykogeniini-1 kiihdyttää glykogeniini-2:n glukosylaatiota.
(Siis: Kromosomin 3:sta koodautuva glykogeniini-1 kiihdyttää X- kormosomista koodautuvan glykogeniini-2 -peptidin glukosyloistumista).
.../ KOMMENTTI. GEENI RBCK1 on kromosomissa 20 p13.
http://www.genecards.org/cgi-bin/carddisp.pl?gene=RBCK1&search=RBCK1/
JOHANNA NILSSON. Two new disorders of glycogenmetabolism.
Institute of Biomedicine, Dep. of pathology, University of Gothenburg.
ISBN 978-91-628-8854-1.
Väitöstilaisuus on vielä edessäpäin.
http://www.gu.se/omuniversitetet/aktuellt/kalendarium/eventdetalj/?eventId=1784826828
Selvitän tähän tiivistelmää suomenkielellä.
On syytä mainita tähän työn osat, koska ne ovat varmaan PUB MED hakulaitteella löydettävissä.
I. Moslemi AR, Lindberg C, Nilsson J, Tajsharagi H, Andersson B, Oldfors A. Glycogenin-1 deficiency and inactivated priming of glycogen synthesis.
N Engl J Med. 2010 Apr 1; 362(13): 1203-10.
2. Nilsson J, Halim A, Moslemi AR, Pedersen A, Nilsson J, LArson G, Oldfors A. Molecular pathogenesis of a new glycogenosis caused by a glycogenin-1 mutation. Biochim Biophys Acta. 2012 Apr; 1822(4): 493-9.
3. Nilsson J, Halim A, Larsson E, Moslemi AR, Oldfors A, Larson G, Nislsson J.
LC_MS/MS characterization of combined glycogenin-1 and glyogenin-2 enzymatic acxtivities reveals their self-glucosylation preferences. Biochim Biophys Acta. 2013 Nov.
4. Nilsson J, Schoser B, Laforet P, Kalev O, Lindberg C, Romero NB, Lopez MD, Akman HO, Wahbi K, Iglseder S, Eggers C, Engel AG, Dimauro S, Oldfors A. Polyglucosan body myopathy caused by defective ubiquitin ligase RBCK1. Ann neurol 2013 Jun 24.
Suomennosta sikäli miten nyt asian pystyn parhaiten ymmärtämään.
- Ensimmäinen vastikään löydetty tauti:
On olemassa kaksi glykogeniini-geeniä. Ne ovat geeni GYG1 ja geeni GYG2 ja ne koodaavat kahta isoformia. Ensinmainittu geeni koodaa glykogeniini-1 muotoa ja jälkimmäinen glykogeniini-2 muotoa. Kehossa on yleisesti glykogeniini-1 muotoa, mutta glykogeniini-2- muotoa esiintyy pääasiassa maksassa sekä sitä on myös sydämessä.
--/ KOMMENTTINI: Tässä täytyy välillä etsiä geenitiedot:
- GYG1 koodautuu somaattisesta kromosomista 3 ja sen asema on Kr. 3. q24-q25.1. joten sitä on sekä miehillä että naisilla 2 versiota. Tämä geeni assosioituu ornitoosiin, glykogeenikertymätautiin XV. Tämä GYG1 koodaa sitä glykogeniinia , jota on lihaksessa.
- GYG2 koodautuu X- kromosomista, sillä Y-kromosomissa on vain lyhennelmä tästä koodista, eikä se tuota funktionaalista proteiinia. Siis naisilla on kaksi funktionaalista versiota GYG2 ja miehillä vain yksi toimiva versio GYG2.
http://www.genecards.org/cgi-bin/carddisp.pl?gene=GYG2
Tähän geeniin GYG2 assosioituvat sekä glykogeenin varastoitumishäiriö tyyppi 0 että glykogeenin varastoitumistauti
Engl. sitaatti:
Entrez Gene summary for GYG2 Gene:
GeneCards Summary for GYG2 Gene:  |
- JOHANNA NILSSONIN väitöskirjassa kuvataan kaksi uutta glykogeenin aineenvaihdunnallista muuntumista koskevaa häiriötä.
- Ensimmäinen tautitapaus on kuvattu 27 -vuotiaalta mieheltä, joka sai fyysisen ponnistelun jälkeen äkilliseen sydänpysähdykseen johtaneen rytmihäiriön. Kliinisestä anamneesista saatiin tietää yläraajojen lihasheikkous. Hänellä todettiin kardiomyopatia ja epänormaali glykogeenin kertymä sydämeen, mutta tahdonalaisessa lihaksessa esiintyi glykogeenin puutosta.
Tätä defektiä pystyi kompensoimaan intermolekulaarisella glykosylaatiolla aktiivi glykogeniini-1, mutta glykogeniini-2 ei pystynyt kompensoimaan autoglykosylaation alkutapahtuman poisjäämistä. .
Transkriptomi ja western blog- analyysit viittasivat siihen, että glykogeniini-2 esiintyy pääasiassa maksassa ja rasvakudoksessa ja vain vähäasteisesti sydämessä ja lihaksissa
Samanaikaisesti expressoituneista glykogeniniini-1 ja glykogeniini-2 glykopeptideistä hankittujen tietojen automaattista analyysia soveltamalla osoitettiin, että glykogeniini-1 kiihdyttää glykogeniini-2:n glukosylaatiota.
(Siis: Kromosomin 3:sta koodautuva glykogeniini-1 kiihdyttää X- kormosomista koodautuvan glykogeniini-2 -peptidin glukosyloistumista).
- Toinen uusi tauti
.../ KOMMENTTI. GEENI RBCK1 on kromosomissa 20 p13.
http://www.genecards.org/cgi-bin/carddisp.pl?gene=RBCK1&search=RBCK1/
- JOHANNA NILSSONIN johtopäätöt:
torsdag 2 januari 2014
GLP , glukagonin kaltainen peptidi ja GLP-1-analogit
Tyypin 2 diabeteksen lääkkeistä GLP-1 analogeista tutkimus. Mikä on niiden vaikutusmekanismi? Immunologisen järjstelmän molekyylit (IL-1 ja IL-6) välittävät lääkkeen vaikutuksia ruokahaluun.
GLP-1 analogit voat suhteellisen uusia T2 Diabetes-lääkkeitä. Göteborgilaistutkimus selvittää niiten vaikutuusta aivotasolla ja ruokahaluun. Nämä GLP-1 analogit muistuttavat ja matkivat vaikutukseltaan kehon omaa hormonia GLP-1 , glukagonin kaltaista peptidi-1:tä, jota tuottaa sekä suoli että aivo. Sekä kehon oma GLP-1 että GLP-1-analogit vapauttavat haiman beetasoluista insuliinia ja lisäksi vähentävät kehon rasvamassaa. Parhaillaan tehdään kliinisiä tutkimuksia näiden lääkkeiden vaikutuksista lihavuuteen sinänsä. Koe-eläimillä GLP-1:n kaltainen lääke lisää sellaista mRNA: ta joka koodaa IL-1 ja IL-6 niissä kahdessa aivo-osassa, jotka säätelevät energia-aineenvaihduntaa ( hypotalamus, aivorunko) .Samaiset interleukiinit sinänsä vähentävät koe-eläimen rasvamassaa.
Ihmisillä siis ruokahalua ja kehonpainoa alentava vaikutus näistä lääkkekistä välittyy interleukiiniteitse.
Tavallisissa diabeteslääkkeissä on GLP-1 analogeja valmisteissa
exenatid, lixisenatid, liraglutid.
Citeras som: Läkartidningen. 2013;110:CMMU Läkartidningen.se 2013-12-23
GLP-1 analogit voat suhteellisen uusia T2 Diabetes-lääkkeitä. Göteborgilaistutkimus selvittää niiten vaikutuusta aivotasolla ja ruokahaluun. Nämä GLP-1 analogit muistuttavat ja matkivat vaikutukseltaan kehon omaa hormonia GLP-1 , glukagonin kaltaista peptidi-1:tä, jota tuottaa sekä suoli että aivo. Sekä kehon oma GLP-1 että GLP-1-analogit vapauttavat haiman beetasoluista insuliinia ja lisäksi vähentävät kehon rasvamassaa. Parhaillaan tehdään kliinisiä tutkimuksia näiden lääkkeiden vaikutuksista lihavuuteen sinänsä. Koe-eläimillä GLP-1:n kaltainen lääke lisää sellaista mRNA: ta joka koodaa IL-1 ja IL-6 niissä kahdessa aivo-osassa, jotka säätelevät energia-aineenvaihduntaa ( hypotalamus, aivorunko) .Samaiset interleukiinit sinänsä vähentävät koe-eläimen rasvamassaa.
Ihmisillä siis ruokahalua ja kehonpainoa alentava vaikutus näistä lääkkekistä välittyy interleukiiniteitse.
Tavallisissa diabeteslääkkeissä on GLP-1 analogeja valmisteissa
exenatid, lixisenatid, liraglutid.
Citeras som: Läkartidningen. 2013;110:CMMU Läkartidningen.se 2013-12-23
Nya rön
- Kommentera
- Läs kommentarer (0)
Hormoner i immunsystemet förmedlar läkemedels effekter på aptit
Autoreferat. Hormonerna interleukin (IL) 1 och
interleukin 6 är viktiga för vårt immunsystem, men de medierar också
vissa läkemedels förmåga att minska aptit och vikt, enligt en studie
från Göteborg. Studien ökar förståelsen för hur GLP-1-analoger, en
relativt ny typ av läkemedel mot typ 2-diabetes, fungerar i hjärnan.
Dessa läkemedel härmar effekterna av det kroppsegna hormonet
GLP-1 (glukagonlik peptid 1) som produceras i tarmen och hjärnstammen.
Kroppseget GLP-1 och GLP-1-analoger i läkemedel frisätter insulin från
betacellerna i bukspottkörteln och minskar dessutom fettmassan med cirka
3 kg. Det pågår kliniska prövningar av dessa läkemedel mot fetma i sig.
Studien visar att behandling av gnagare med läkemedel som härmar GLP-1 ökar mRNA som kodar för de två immunmodulerande hormonerna IL-1 och IL-6 i hypotalamus och hjärnstammen, två delar av hjärnan som reglerar energiomsättningen. Samma forskargrupp har tidigare visat att IL-6 (och även IL-1) i sig minskar fettmassan hos friska försöksdjur via effekter i hjärnan [Wallenius et al. Nat Med. 2002;8:75-9]. Nu presenteras för första gången bevis för att de två interleukinerna medierar de positiva effekterna av GLP-1 på fetma. GLP-1-analoger kunde inte minska aptiten eller kroppsvikten om verkningarna av IL-1 och IL-6 hade blockerats med behandling med neutraliserande antikroppar eller antagonister. Dessa resultat stärks av att hämning av effekterna av IL-6 och IL-1 med genutslagning hos möss också blockerade effekterna av en GLP-1-analog.
Substanser som härmar GLP-1 finns i vanliga diabetesläkemedel som exenatid, lixisenatid och liraglutid. Även om dessa läkemedel har funnits på marknaden i snart 10 år har mekanismerna bakom deras fetmahämmande effekter i hjärnan till stora delar varit okända. Upptäckten att hormonerna IL-1 och IL-6 förmedlar den sänkning av aptit och kroppsvikt som fås med dessa GLP-1-liknande läkemedel kan i förlängningen leda till nya strategier för behandling av fetma hos människa.
Studien visar att behandling av gnagare med läkemedel som härmar GLP-1 ökar mRNA som kodar för de två immunmodulerande hormonerna IL-1 och IL-6 i hypotalamus och hjärnstammen, två delar av hjärnan som reglerar energiomsättningen. Samma forskargrupp har tidigare visat att IL-6 (och även IL-1) i sig minskar fettmassan hos friska försöksdjur via effekter i hjärnan [Wallenius et al. Nat Med. 2002;8:75-9]. Nu presenteras för första gången bevis för att de två interleukinerna medierar de positiva effekterna av GLP-1 på fetma. GLP-1-analoger kunde inte minska aptiten eller kroppsvikten om verkningarna av IL-1 och IL-6 hade blockerats med behandling med neutraliserande antikroppar eller antagonister. Dessa resultat stärks av att hämning av effekterna av IL-6 och IL-1 med genutslagning hos möss också blockerade effekterna av en GLP-1-analog.
Substanser som härmar GLP-1 finns i vanliga diabetesläkemedel som exenatid, lixisenatid och liraglutid. Även om dessa läkemedel har funnits på marknaden i snart 10 år har mekanismerna bakom deras fetmahämmande effekter i hjärnan till stora delar varit okända. Upptäckten att hormonerna IL-1 och IL-6 förmedlar den sänkning av aptit och kroppsvikt som fås med dessa GLP-1-liknande läkemedel kan i förlängningen leda till nya strategier för behandling av fetma hos människa.
Referenser
Shirazi R, Palsdottir V, Collander J, Anesten F,
Vogel H, Langlet F, Jaschke A, Schürmann A, Prévot V, Shao R, Jansson
JO, Skibicka KP. Proc Natl Acad Sci U S A. 2013;110:16199-204.
Pohdittava artikkeli - ja suomennettavakin , GIP
Citeras som: Läkartidningen. 2013;110:CPD4
Läkartidningen.se 2013-12-30
Nya rön
Medelhavskost utan frukost ger lägre glukosvärden
Autoreferat. Jämförelser mellan lågkolhydratkost
och lågfettkost vid diabetesbehandling har nästan uteslutande avsett
förändringar av olika riskmarkörer som studerats i fastande. I en ny
koststudie vid Linköpings universitet på patienter med kost- eller
tablettbehandlad diabetes undersöktes istället de mer akuta metabola
effekterna av tre olika koster; lågkolhydratkost, lågfettkost och
medelhavskost.
Lågfettkosten hade en näringsfördelning som sedan länge varit den rekommenderade i de nordiska länderna. Lågkolhydratkosten innehöll en relativt låg andel kolhydrater (ca 20 energiprocent) och en hög andel fett (ca 50 energiprocent). Medelhavskosten var komponerad med endast en kopp svart kaffe till frukost och hela energiinnehållet till lunch, med vin som måltidsdryck. Kaloriinnehållet i de tre menyerna, för frukost och lunch tillsammans, var likvärdiga. 21 patienter med typ 2-diabetes rekryterades. Under tre olika testdagar fick de äta frukost och lunch från de ingående kosttyperna. All mat lagades av en dietist och patienterna åt i sällskap med studieledarna. Blodprover togs sammanlagt sex gånger under varje testdag. Blodglukos, blodfetter, insulin och GIP (glucos-dependent insulinotropic peptide) analyserades.
Lågkolhydratkosten gav påtagligt lägre blodsockerstegringar efter måltid men en trend till högre triglycerider jämfört med lågfettkosten, samtidigt som lågfettkosten inducerade högre insulinstegringar än vad man fick av lågkolhydratkosten, se Figur 1. Inga signifikanta skillnader kunde ses avseende HDL- eller LDL-kolesterol vid samma jämförelser.
Ett intressant resultat var att medelhavskosten inte gav högre blodsockervärden än lågfettkosten efter lunch, trots skillnaden i energiinnehåll vid lunchen. En förklaring kan vara den kraftiga stegringen av GIP som leder till ökad insulinutsöndring.
Resultaten talar för att lågkolhydratkost jämfört med lågfettkost har en mindre belastande effekt på de insulinproducerande betacellerna vid diabetes. Trenden till höga nivåer av triglycerider efter måltid med lågkolhydratkost skulle kunna utgöra en riskfaktor, men å andra sidan har i flera studier visats lägre faste-triglyceridvärden vid intag av lågkolhydratkost jämfört med lågfettkost. Författarna har tidigare redovisat en studie med de långsiktiga effekterna av lågfett- och lågkolhydratkost (Guldbrand et al, Diabetologia 2012).
Att den energirika lunchmåltiden med medelhavskost gav likvärdig glukosnivå efter lunch jämfört med lågfettkosten ger anledning att ifrågasätta om det är riktigt att vid diabetes äta flera mindre måltider under dagen. Om den gynnsamma effekten av medelhavskosten berodde på den stora måltiden i sig som frigör GIP, de specifika näringsämnena eller vinet, kräver ytterligare forskning.
Lågfettkosten hade en näringsfördelning som sedan länge varit den rekommenderade i de nordiska länderna. Lågkolhydratkosten innehöll en relativt låg andel kolhydrater (ca 20 energiprocent) och en hög andel fett (ca 50 energiprocent). Medelhavskosten var komponerad med endast en kopp svart kaffe till frukost och hela energiinnehållet till lunch, med vin som måltidsdryck. Kaloriinnehållet i de tre menyerna, för frukost och lunch tillsammans, var likvärdiga. 21 patienter med typ 2-diabetes rekryterades. Under tre olika testdagar fick de äta frukost och lunch från de ingående kosttyperna. All mat lagades av en dietist och patienterna åt i sällskap med studieledarna. Blodprover togs sammanlagt sex gånger under varje testdag. Blodglukos, blodfetter, insulin och GIP (glucos-dependent insulinotropic peptide) analyserades.
Lågkolhydratkosten gav påtagligt lägre blodsockerstegringar efter måltid men en trend till högre triglycerider jämfört med lågfettkosten, samtidigt som lågfettkosten inducerade högre insulinstegringar än vad man fick av lågkolhydratkosten, se Figur 1. Inga signifikanta skillnader kunde ses avseende HDL- eller LDL-kolesterol vid samma jämförelser.
Ett intressant resultat var att medelhavskosten inte gav högre blodsockervärden än lågfettkosten efter lunch, trots skillnaden i energiinnehåll vid lunchen. En förklaring kan vara den kraftiga stegringen av GIP som leder till ökad insulinutsöndring.
Resultaten talar för att lågkolhydratkost jämfört med lågfettkost har en mindre belastande effekt på de insulinproducerande betacellerna vid diabetes. Trenden till höga nivåer av triglycerider efter måltid med lågkolhydratkost skulle kunna utgöra en riskfaktor, men å andra sidan har i flera studier visats lägre faste-triglyceridvärden vid intag av lågkolhydratkost jämfört med lågfettkost. Författarna har tidigare redovisat en studie med de långsiktiga effekterna av lågfett- och lågkolhydratkost (Guldbrand et al, Diabetologia 2012).
Att den energirika lunchmåltiden med medelhavskost gav likvärdig glukosnivå efter lunch jämfört med lågfettkosten ger anledning att ifrågasätta om det är riktigt att vid diabetes äta flera mindre måltider under dagen. Om den gynnsamma effekten av medelhavskosten berodde på den stora måltiden i sig som frigör GIP, de specifika näringsämnena eller vinet, kräver ytterligare forskning.
Referenser
Fernemark H, Jaredsson C, Bunjaku B, Rosenqvist U, Nyström FH, Guldbrand H. PLOS ONE. 27 november 2013.
Prenumerera på:
Inlägg (Atom)