Etiketter

Summa sidvisningar

Leta i den här bloggen

måndag 11 april 2016

Diabeettisen gastropareesin ongelmatiikka

Tätä asiaa käsitteli käytännössä dietisti Eva Olausson Sahlgrenskan diabetespoliklinikalla siihen aikaan kun opiskelin dietetiikkaa.
Hänen  terapiansa tuloksena  gastropatiaa potevat diabetikot saivat tasaisempaa  verensokeria. 
http://www.evaolausson.se/
Olaussonilta on  nettiohjeita, myös reseptejä.

Diabeettinen gastropareesi tarkoitaa, että  neuropatia on aiheutanut ruoankulkemiseen jhankaluuskia ruokatorven alueella ja ruokaa  pysytelee liian kauan mahalaukussa, ja siten kun se loputla imeytyy, tulee hyökynä paljon sokeria vereen, Sitä viiveella odotellessa  keho ehtii  joutua hypoglykemiaan. Kaikenkaikkiaan sokeritasapaino huononee gastropareesisista, jota diabeteksen pitkittyessä ajan mukaan kehittyy toisille.

GASTROPAREESISTA yleistä:
Mm. nettilähde  http://www.askdrmaxwell.com/2014/06/treat-gastroparesis-naturally/
antaa olennaista perustietoa tästä mahalaukun hermostollsiesta  rappeutumasta.
Kys on nervus Vagus-hermon  erikoisesta  hermotusalueesta. nimittäin sillä on haaroja, kuten ylähaara ja alahaara ja niillä on  kärhien hermotuskohdat siten, että jos kärhet, kärhisäieverkostot,  alkavat kärsiä  jollain tavalla,  kärhikohtien väliin tulee funktionaalisesti huonompaa toimntaa , mikä tuntuu esim ruoan takeltumisella ruokatorveen syödessä. koska ruoaktorven normaali matelu yhtäkkiä häiriintyy hermokärkien  päteverkoston kohdalla.
10. aivohermo, Nervus vagus (X)  hermottaa sydäntä, kehkoja, mahaa, maksaa ja munuaisia. Sitä onkin sanottu keuhko-maha-hermoksei N. pneumogastricus, vaikka se on aivohermo. Sen sisälmysosa on parasympaattinen.   Vegushermolla on ylempi ja alempi ganglio, joista  alempi on parasympaattinen.  Vagus omaa kolmenlaisia säikeitä ja vastaavia juurisoluja:  tuntosäikeitä ja soluja, motorisia säikeitä ja soluja ja parasympaattisia säikeitä ja soluja.
Vaguksen sensoriset juurisolut sijaitsvat ylemmässä gangliossa pääasiallisesti.  Niiden sentraaliset jatkeet päättyvät Tractus Solitarius-nimiseen päätetumakkeeseen (Tähän tumakkeeseen tulee ihmisellä  säikeitä N. glossofaryngeuksesta  (IX)  ja nervus vaguksesta (X)   nielun ja kurkunpään limakalvolta ja myös   nervus facialiksen (VII)  pars intermediaosan makuaistisäikeitä).
Motoriset juurisolut  muodostavat  Nucleus ambiguus tumakkeen taemman osan.
Parasympaattiset juurisolut sijaitsevat  nervus vaguksen  tumakkeessa Nucleus originis dorsalis nervi vagi.
Miten vagushermo kulkee?

Tässä kuvaan siitä hetkestä kun  se tulee ulos kallon sisältä:
Se sijaitsee  jugularis interna-laskimon edessä,  nervus hypoglossus (XII) sivulla lateraalisesti ja sitten menee alempaan ganglioon. kaulan alueella  nervus vagus kulkee alaspäin  sisemmän jugulaarisen laskimon ja yhteisen  carotis-valtimon  välissä .  ylemmän rintakehäaukon läpi  molemmat vagukset menevät rintaontelon puolelle. Oikeanpuoleinen vagus ristitsee etupuolelta  oikean subclavia-valtimon ja vasen vagus etupuolelta  aortankaaren.  Välikarsinassa (mediastinum)  molemmat vagukset  kulkevat  keuhkojuuren takapuolella ja siten muosotqavat  runsaan hermoverkoston punoksineen ruokatorven  ja sitten  saapuvat ruokatorven myötä  hiatus oesophagus-aukolle, joka sijaitsee palleassa ja siitä alkaen  tapahtuu vahvaa haaroittumista ja punoksen muodostusta sympaticus-säikeitten kansaa  niin että  ei enää voida  puhua mmistään  vagus-runkosta.

Eri kulkujaksojensa mukaan VAGUS-hermossa  erotetaan  pääosa,   kaulaosa,  rintaosa ja  vatsaosa.
(Luettelen nämä neljä aluetta haaroineen tarkoituksella herättää ymmärtämään,että on tärkeää välttää hyperglykemiaa, joka on hermotoksista.  Euglykemialla edistetään sitä,että neuropatioita ei pääse kehittymään.  Se tulisi olla diabeteksen hoidon päämäärä komplikaatioiten välttämiseksi).

  • Pään osa Ganglion inferius- tumakkeeseen asti.
1. Ramus( haara). meningeus (Ggl. superiuksesta  kovaan aivokalvoon kallon takakuopassa.
2. Ramus auricularis  lähtee ylägangliosta  ja menee  canaliculus mastoideus- kanavaan.  kaksi päätehaaraa. Toinen  menee  N. facialiksen  N. auricularis posterior-hermoon. Toinen menee ulkoiseen korvakäytävään ja ihoon korvalehden taustaan ja tämä on nervus vagus-hermon ainoa ihohaara.

  • Kaulaosa lähtee  alagangliosta , päätyy siihen kohtaan, mikä menee rintaonteloon. 
1. Rr. pharyngei .IX ja X  sekä sympaattiset säikeet  muodostavat nielupunoksen Plexus pharyngeus. , josta tulee motorisia säikeitä nielemislihaksiin ja sensorisia säikeitä nielun limakalvoon.
2. N. laryngeus superior.  ylempi kurkkuhermo  haaraantuu alagangliosta ja kulkee sisemmän  carotisvaltimon mediaalipuolelta eteen ja alas kurkunpäähän (larynx). Kieliluun isonsarven kohdalla se haaraantuunkahteen haaraan.
a. Ramus externus, ulompi haara, ei mene kurkunpäähän vaan alaspäin lihakseen M. cricothyreoideus ja M. constrictor pharyngis inferior ja  antaa niihin motorista hermotusta.
b. Ramus internus menee  membrana thyreo-hyoidea- kalvon läpi ja limakalvon alla recessus piriformis kohtaan ( plica nervi laryngei)  ja haaraantuu Epiglottislimakalvoon, Pharynx-limakalvoon ja Larynx-limakalvoon.  (siis kurkunpään kanteen, nieluun ja kurkunpäähän). Alaspäin vievä (ylemmän kurkkuhermon)  haara yhdistyy   nousevaan N. laryngeus inferior (alemman kurkkuhermon ) -haaraan. Tätä sanotaan Galensche Anastomose, Galenin  anastomoosiksi.
https://de.wikipedia.org/wiki/Galen-Anastomose
3. Rr.(rami cardiaci superiores. (Ylemmät sydänhermohaarat).  Näitä vaguksen  ylempiä sydänhaaroja  lähtee vaihtelevan vahvuisina ja vaihtelevalta korkeudelta ylemmän kurkkuhermon rungosta, tiheimmin kuitenkin  alaganglion alta. ne kulekvat yhteisen päänvaltimon(carotis communis) myötä alaspäin ja menevät rintaonteloon sydänpunokseen Plexus cardiacus.

  • Rintaosa  
1. N. laryngeus recurrens, "takaisinpäin palaava  hermo". Tämä  vagushaara kiertää oikealla  subclavia valtimon, vasemmalla aortan kaaren ja  kaulalla  se menee ylöspäin  uurteessa, joka on henkitorven ja ruokatorven välissä . Se menee  kilpirauhasen takapinnalla ja ristitsee  alemman kilpirauhasvaltimon ja kilpirauhasoperaatioissa  täytyykin  kirurgien varoa tätä hermoa erityisen huolellisesti.
 Sen päätehaara , nervus laryngeus inferior ( alempi kurkkuhermo), menee kilpiruston alasarvenkohdalla  M. constrictor pharyngis medius- lihaksen. läpi.  ja tulee kurkunpään sisäpuollelle hermottaen  kaikkia  sisempiä kurkunpäälihaksia ja  cavum laryngis- limakalvoa.(lurkunpääontelon limakalvoa)
Nervus laryngeus recurrens, " palaava kurkkuhermo", antaa vielä  haaroja sydänpunokseenkin: Rr. cardiaci medii), henkitorvelle (Rr. tracheales), ruokatorvelle (Rr. oesophagei) ja  alempaan nielunsulkijaan (Rr. pharyngei).
2. Rr. cardiaci inferiores  sydänpunoxeen. plexus cardiacus.
3. Rr. bronchiales. Näitä haaroja keuhkoputkiin lähtee  hermorungosta,  kun se ristitsee keuhkoputken  (bronchus). Haarat muodostavat yhdessä sympaticus-säikeitten kanssa  etummaisen ja taemman keuhkopunoksen, plexus pulmonalis anterior ja posterior.
4. Rr. oesophagei.  oikeanpuoleinen nervus vagus muodostaa  ruokatorven takaosaan hermotusta   ja vasen nervus vagus  ruokatorven etuosan hermotusta    näillä haaroilla alaspäin ruokatorvea ja monin säikein  nämä etu ja takapinnan haarat  tekevät keskenään  punoutumista  plexus oesophagus- pruokatorvipunokseksi.  ja sen haarat huolehtivat  ruokatorven rintakehäosan (pars thoracica)  lihaksistosta ja limakalvosta..
5. Rr. pericardiaci- haarat menevät sydänpussiin (pericardium).

Vatsaosa 
Plexus oesphageus, ruokatorvipunos, lähettää kaksi pääjuostetta: etumainen ja takimmainen vagaalinen juoste: truncus vagalis anterior ja truncus vagalis posterior ja ne sisältävät säikeitä molemmmsita vagushermoista. ( sinister, dexter)
Truncus vagalis anterior menee  etumaiseen mahapunokseen Plexus gastricus anterior ja siitä lähtee haaroja maksaan ja mahalaukkuun.
Vahvempi  taempi juoste, truncus vagalis posterior levittäytyy taempaan mahaseinämään  Plexus gastricus posterior,   josta lähtee mahahaarojen Rr. gastrici lisäksi myös   Rr. coeliaci, jotka  menevät suolistoplexukseen  plexus coeliacus.     ja siitä sympaticus-säikeitten keralla haimaan, pernaan, munuaisiin, lisämunuaisiin, ohutsuoleen ja paksusuoleen.
Paksusuoli  saa Vagus-hermosta käsin  (siis kraniaalisesta parasympatikuksesta) hermotusta   colon transversum osan kaudaaliseen  kolmannekseen asti vain (.Loppuosa paksusuolta saa parasympaattisen hermotuksen tästä  colon transversum-rajakohdasta sakraalisesta parasympatikuksesta.  Rajakohta on Cannon-Böhmscher Punkt ja se on myös rajakohta  paksunsuolen peristaltiikan  molemmille tyypeille.
 https://de.wikipedia.org/wiki/Cannon-B%C3%B6hm-Punkt

Tämä teksti on vanhasta anatomian kirjastani  saksasta  suomennosta.  sivuilta der 10. Hirnnerv, N. Vagus (X). S. 156- 138.
Voss und Herrlinger. Taschenbuch der Anatomie.
 Band III. 12. Aufl.
 Gustav Fischer Verlag Stuttgart. 1964.


lördag 9 april 2016

A-solu fokuksessa haiman saarekkeessa


http://journal.frontiersin.org/article/10.3389/fphys.2012.00349/full

Review ARTICLE

Front. Physiol., 04 September 2012 | http://dx.doi.org/10.3389/fphys.2012.00349

GLUKAGONI-eritys ja signalointi diabeteksen kehkeytymisessä 

Glucagon secretion and signaling in the development of diabetes

Herbert Y. Gaisano1*, Patrick E. MacDonald2* and Mladen Vranic1*

1Departments of Medicine and Physiology, University of Toronto, Toronto, ON, Canada
2Department of Pharmacology, University of Alberta, Edmonton, AB, Canada


A-soluista tapahtuva normaali glukagonin vapautuminen edistää  glukoosin mobilisoitumista, mikä vastavaikuttaa siihen hypoglykemiseen vaikutukseen, mikä insuliinista tulee ja sen takia se varmistaa glukoosin homeostaasia.
Diabeteksen hoidossa pyritään tiukasti vähentämään hyperglykemiää, jota voitaisiin välttää kroonisia komplikaatioita ja tällöin aiheutuva hypoglykemia taas liipaisee usein  esiin glukagonin vapautumista A-soluista ja hyperglykemiset komplikaatiot vain varmistuvat.
Tässä katsauksessa intgegroidaan glukagonierityksen fysiologia kehossa  glukoosin homeostaasissa yksittäisen A-solun signaloinniks ja miten molemmat  ovat häiriintyneet diabeteksessa


  • Normal release of glucagon from pancreatic islet α-cells promotes glucose mobilization, which counteracts the hypoglycemic actions of insulin, thereby ensuring glucose homeostasis. In treatment of diabetes aimed at rigorously reducing hyperglycemia to avoid chronic complications, the resulting hypoglycemia triggering glucagon release from α-cells is frequently impaired, with ensuing hypoglycemic complications. This review integrates the physiology of glucagon secretion regulating glucose homeostasis in vivo to single α-cell signaling, and how both become perturbed in diabetes.
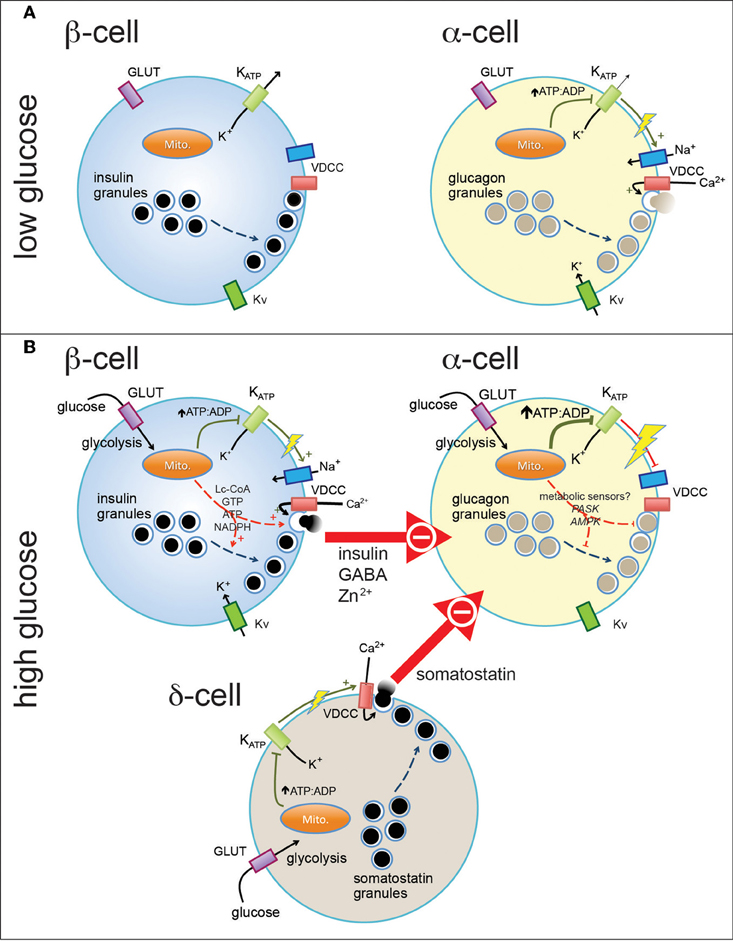
 A-solu  miljöössään haimasaarekkeen mikro-organismissa  ei säädy vain sisäisistä tapahtumistaan, vaan sitä säätää myös parakriiniset  signaalit , erityisesti vieressä sijaitsevat insuliinia erittävät beta-solut ja somatostatiinia erittävät  D-solut.  Tässä linkin katsauksessa keskustellaan  A-solun sisäisestä säätelystä, johon kuuluu glukoosiherkkyys ja jonikanavasäätö, joista glukagonieritys aiheutuu.
  Sitten tutkijat käsitelevät monimutkaista  vuorovaikutusta haimasaarekkeen eri solujen kesken ja sitä vuorovaikutusten katkeamaa, mikä tapahtuu diabeteksessa,  ja joka johtaa  osaltaan glukagonierityksen virhesäätöön.
  •  α-cells within the social milieu of the islet micro-organ are regulated not only by intrinsic signaling events but also by paracrine regulation, particularly by adjacent insulin-secreting β-cells and somatostatin-secreting δ-cells. We discuss the intrinsic α-cell signaling events, including glucose sensing and ion channel regulation leading to glucagon secretion.  We then discuss the complex crosstalk between the islet cells and the breakdown of this crosstalk in diabetes contributing to the dysregulated glucagon secretion.
 BETA-soluista ja D-soluista vapautuu monenlisia eritystuotteita ja nisitä jokainen voi joutua diabeteksessa epätasapainoon-  niistä on joko puutetta tai niitä erittyy liikaa.  Tässä artikkelisa käsitellään niistä  pääasiallisimpia. beta-solun INSULIINIA ja vähemmän tunnettua D-solun SOMATOSTATIINIA, joiden oletetaan   toimivan parakriinisina On/Off- vaihteina  , jotka hienosäätelevät  A-solun eritysvasteita terveydessä ja diabeteksessa.
  •  Whereas, there are many secretory products released by β- and δ-cells that become deficient or excess in diabetes, we discuss the major ones, including the better known insulin and lesser known somatostatin, which act as putative paracrine on/off switches that very finely regulate α-cell secretory responses in health and diabetes.
 On huomioitava, että useassa 1-tyypin diabeteksen eläinmallissa  blokeerattaessa  liika somatostatiinin vaikutukset A-soluun  voitiin normalisoida glukagonin eritys riittävästi, jotta saavutettiin normoglykeminen vaste hypoglykemisiin   kohtauksiin.
  •  Of note in several type 1 diabetes (T1D) rodent models, blockade of excess somatostatin actions on α-cell could normalize glucagon secretion sufficient to attain normoglycemia in response to hypoglycemic assaults.
On vain  vähä vähältä edistytty   diabeteksessa esiintyvän A-solu-patofysiologian selvittelyssä , sillä A-solujen lukumäärä haimasaarekkeessa on pieni  ja diabeteksessa saarekemassa  vähenee ja tulehtee  vakavasti. Mutta viime aikoina on  uusin lähestymiskeinoin  saatu voitettua näitä rajoituksia.
  •  There has been slow progress in fully elucidating the pathophysiology of the α-cell in diabetes because of the small number of α-cells within an islet and the islet mass becomes severely reduced and inflamed in diabetes. These limitations are just now being surmounted by new approaches.


Betasolun, A-solun, D-solun ja PP-solun väliset suhteet


Fig. 81.6 Interrelationship between insulin, glucagon, and somatostatin secretion.https://www.google.se/search?q=Beta,+A-,+D+and+PP-cell+interrelations&biw=1367&bih=892&source=lnms&tbm=isch&sa=X&ved=0ahUKEwiUtbDRjYHMAhUpGZoKHbgRC0MQ_AUIBigB&dpr=0.9#tbm=isch&q=insulin%2C+glukagon%2C+somatostatin+regulation&imgrc=n0ffZtlgKPGwsM%3A

Beta- alfa ja delta-solut ja, GABA-säätelyn merkitys

Search results

Items: 6

1.
Israël M.
Mol Cancer. 2012 Sep 6;11:63. doi: 10.1186/1476-4598-11-63.

A possible primary cause of cancer: deficient cellular interactions in endocrine pancreas.

Israël M1. Abstract

BACKGROUND:

Cancer is a devastating type of disease. New and innovative ways to tackle cancers that have so far proved refractive to conventional therapies is urgently needed. It is becoming increasingly clear that, in addition to conventional therapeutics targeting by small molecules, that tumor cell metabolism presents new opportunities to target selectively specific cancer cell populations. Metabolic defects in cancer cells can be manifested in many ways that might not be readily apparent, such as altering epigenetic gene regulation for example. The complex rewiring of metabolic pathways gives tumor cells a special advantage over differentiated cells, since they deplete body stores as fuel for their growth and proliferation. Tumor metabolism looks simpler when we consider that some enzymatic switches are in a neoglucogenic direction thereby depleting body stores. However, these pathways may be inadequately switched on by catabolic hormones (glucagon, epinephrine and cortisol) in a specific situation where anabolism is activated by, for example insulin released from beta pancreatic cells or IGF, inducing mitosis and synthesis that are powered by glucose catabolism. Such a hybrid metabolic situation would be reached if a pancreatic beta cell mechanism, mediated by GABA, failed to silence neighboring alpha cells and delta cells.
The inhibitory transmitter GABA hyperpolarizes alpha and delta cells via their GABA A receptors, and blocks the release of glucagon and somatostatin.
 Alternatively, an anomaly of alpha cell channels, would lead to a similar situation. Whatever is the alteration, anabolism fails to silence catabolism and enzymatic switches controlled by kinases and phosphatases adopt an inadequate direction, leading to a hybrid metabolic rewiring found in cancer. It is daring to formulate such a hypothesis as this. However, it is quite possible that the starting point in cancer is an alteration of the endocrine pancreas, suppressing the mechanism by which beta cells silence the neighboring alpha and delta cells, with GABA and Zn2+.
PMID:
22954255
[PubMed - indexed for MEDLINE]

PMCID:
PMC3438135

Free PMC Article
Free PMC Article
2.
Braun M, Ramracheya R, Bengtsson M, Clark A, Walker JN, Johnson PR, Rorsman P.
Diabetes. 2010 Jul;59(7):1694-701. doi: 10.2337/db09-0797. Epub 2010 Apr 22.
3.
Wendt A, Birnir B, Buschard K, Gromada J, Salehi A, Sewing S, Rorsman P, Braun M.
Diabetes. 2004 Apr;53(4):1038-45.
4.
5.
Sorenson RL, Garry DG, Brelje TC.
Diabetes. 1991 Nov;40(11):1365-74. Review.
PMID:
1936599
6.
Garry DJ, Sorenson RL, Elde RP, Maley BE, Madsen A.
Diabetes. 1986 Oct;35(10):1090-5.
PMID:
2875911

Alfa-solut, glukagoni ja rasvahapot

http://www.ncbi.nlm.nih.gov/pubmed/16802400
Diabetes Metab Res Rev. 2007 Mar;23(3):202-10.

Fatty acid-induced effect on glucagon secretion is mediated via fatty acid oxidation.

BACKGROUND: While the effect of fatty acids and ectopic triglyceride storage in pancreatic beta cells has been well-defined, only limited information is available on alpha cells. This study evaluates the long-term impact of fatty acids on alpha cell function and proliferation as well as fatty acid oxidation.

METHODS: Clonal alpha cells were cultured with fatty acids in the presence of high glucose for up to 3 days. The influence of fatty acids on glucagon secretion, glucagon content and triglyceride accumulation from 24 to 72 h was investigated. After a - 72 h culture, cell proliferation, carnitine palmitoyl transferase-1 mRNA level and the effect of etomoxir were also elucidated.

RESULTS: Fatty acids stimulated glucagon secretion and increased triglyceride accumulation in a time- and dose-dependent manner, but inhibited alpha cell proliferation. Lower concentrations (0.125-0.25 mM) of fatty acids significantly increased glucagon secretion at 48 and 72 h, but did not affect triglyceride content. However, a marked increment in triglyceride accumulation occurred in the presence of 0.5 mM fatty acids. Fatty acids caused an up-regulation of the expression of carnitine palmitoyl transferase-1 gene. Etomoxir (1 microM) reversed fatty acid-induced glucagon hypersecretion, but did not inhibit carnitine palmitoyl transferase-1 mRNA level.

CONCLUSIONS: Our data indicates that compared with triglyceride accumulation, glucagon secretion is more sensitive to changes in fatty acid concentration. The effect of fatty acids on the glucagon response is mediated through their oxidation. The high carnitine palmitoyl transferase-1 gene expression and the accumulation of triglyceride may initially be a compensatory oxidation reaction to elevated fatty acids.

(c) 2007 John Wiley & Sons, Ltd.
PMID:
16802400
[PubMed - indexed for MEDLINE]

http://www.ncbi.nlm.nih.gov/pubmed/22479612 

BACKGROUND:

Long-term exposure to high levels of fatty acids impairs insulin secretion and exaggerates glucagon secretion. The aim of this study was to explore if the antihyperglycemic agent, Isosteviol (ISV), is able to counteract palmitate-induced α-cell dysfunction and to influence α-cell gene expression.

Insuliiniherkkyys

http://www.ncbi.nlm.nih.gov/pubmed/26333405
J Biosci. 2015 Sep;40(3):593-605.

The emerging roles of inositol pyrophosphates in eukaryotic cell physiology.

Thota SG1, Bhandari R. Abstract
Inositol pyrophosphates are water soluble derivatives of inositol that contain pyrophosphate or diphosphate moieties in addition to monophosphates.

 The best characterised inositol pyrophosphates, are IP7 (diphosphoinositol pentakisphosphate or PP-IP5), and IP8 (bisdiphosphoinositol tetrakisphosphate or (PP)2-IP4). These energy-rich small molecules are present in all eukaryotic cells, from yeast to mammals, and are involved in a wide range of cellular functions including apoptosis, vesicle trafficking, DNA repair, osmoregulation, phosphate homeostasis, insulin sensitivity, immune signalling, cell cycle regulation, and ribosome synthesis. Identified more than 20 years ago, there is still only a rudimentary understanding of the mechanisms by which inositol pyrophosphates participate in these myriad pathways governing cell physiology and homeostasis.

 The unique stereochemical and bioenergetic properties these molecules possess as a consequence of the presence of one or two pyrophosphate moieties in the vicinity of densely packed monophosphates are likely to form the molecular basis for their participation in multiple signalling and metabolic pathways. The aim of this review is to provide first time researchers in this area with an introduction to inositol pyrophosphates and a comprehensive overview on their cellular functions.
PMID:
26333405
[PubMed - in process] 
 
Barker CJ, Berggren PO.
Pharmacol Rev. 2013 Feb 19;65(2):641-69. doi: 10.1124/pr.112.006775. Print 2013 Apr. Review.
Studies of inositol polyphosphates in the pancreatic β-cell have led to an exciting synergism between new discoveries regarding their cellular roles and new insights into β-cell function. Because the loss or malfunction of the β-cell is central to diabetes, these studies open the possibility of new pharmacological interventions in a disease that has reached epidemic proportions worldwide. Using the β-cell as our prime but not exclusive example, we examine the inositol polyphosphates in three main groups: 
1) inositol 1,4,5-trisphosphate and its influence on Ca(2+) signaling, specifically in a cell in which cytoplasmic-free Ca(2+) concentration is principally increased by plasma membrane standing voltage-gated Ca(2+) channels; 
2) higher inositol polyphosphates including a novel second messenger inositol 3,4,5,6-tetrakisphosphate and a regulatory role for inositol hexakisphosphate in β-cell Ca(2+) homeostasis and exo- and endocytosis; and
 3) inositol pyrophosphates and their role in β-cell exocytosis, together with the exciting possibility of being novel targets for therapy in diabetes. We conclude with some of the new perspectives that are likely to become apparent in the next few years.Free Article
2.
Barker CJ, Berggren PO.
Adv Biol Regul. 2012 Sep;52(3):361-8. doi: 10.1016/j.jbior.2012.05.002. Epub 2012 May 26. Review.
In a previous review for Advances in Enzyme Research (Berggren and Barker, 2008) we outlined the history of our involvement in discovering important roles for inositides in the insulin secreting pancreatic beta cell. In this current appraisal we bring the work up to date and project how we believe this field will continue to develop in the future. Recently, we have seen an important synergism between the growth in our understanding of inositide function and our knowledge of beta cell stimulus-secretion coupling in both physiological and pathophysiological contexts. Important advances have been made in three areas.
 1. The classic regulation of cytoplasmic free Ca(2+) concentration [Ca(2+)](i) by Inositol 1,4,5-trisphosphate (Ins(1,4,5)P(3)) and its receptor,
 2. A novel role of the inositol pyrophosphates, especially 5-diphosphoinositol pentakisphosphate (5-PP-InsP(5)), in exocytosis,
 and 3. The unique signaling roles of PI3K pathways instituted by the engagement of the insulin receptor in an autocrine, positive feed-back loop. We examine each of these in turn and close with an assessment of the likely future directions the research will take.
3.
Illies C, Gromada J, Fiume R, Leibiger B, Yu J, Juhl K, Yang SN, Barma DK, Falck JR, Saiardi A, Barker CJ, Berggren PO.
Science. 2007 Nov 23;318(5854):1299-302.
Inositol pyrophosphates are recognized components of cellular processes that regulate vesicle trafficking, telomere length, and apoptosis. We observed that pancreatic beta cells maintain high basal concentrations of the pyrophosphate diphosphoinositol pentakisphosphate (InsP7 or IP7). Inositol hexakisphosphate kinases (IP6Ks) that can generate IP7 were overexpressed. This overexpression stimulated exocytosis of insulin-containing granules from the readily releasable pool. Exogenously applied IP7 dose-dependently enhanced exocytosis at physiological concentrations. We determined that IP6K1 and IP6K2 were present in beta cells. RNA silencing of IP6K1, but not IP6K2, inhibited exocytosis, which suggests that IP6K1 is the critical endogenous kinase. Maintenance of high concentrations of IP7 in the pancreatic beta cell may enhance the immediate exocytotic capacity and consequently allow rapid adjustment of insulin secretion in response to increased demand.Free Article

Haimasaarekkeen A-solut

A-solu ja PIP2

http://www.ncbi.nlm.nih.gov/pubmed/17182843

Mol Biol Cell. 2007 Feb;18(2):688-96. Epub 2006 Dec 20.

Exophilin4/Slp2-a targets glucagon granules to the plasma membrane through unique Ca2+-inhibitory phospholipid-binding activity of the C2A domain.

Rab27a and Rab27b have recently been recognized to play versatile roles in regulating the exocytosis of secretory granules and lysosome-related organelles by using multiple effector proteins.
 However, the precise roles of these effector proteins in particular cell types largely remain uncharacterized, except for those in pancreatic beta cells and in melanocytes.

 Here, we showed that one of the Rab27a/b effectors, exophilin4/Slp2-a, is specifically expressed in pancreatic alpha cells, in contrast to another effector, granuphilin, in beta cells. Like granuphilin toward insulin granules, exophilin4 promotes the targeting of glucagon granules to the plasma membrane.

 Although the interaction of granuphilin with syntaxin-1a is critical for the targeting activity, exophilin4 does this primarily through the affinity of its C2A domain toward the plasma membrane phospholipids phosphatidylserine and phosphatidylinositol-4,5-bisphosphate (PIP2) .

 Notably, the binding activity to phosphatidylserine is inhibited by a physiological range of the Ca(2+) concentration attained after secretagogue stimulation, which presents a striking contrast to the Ca(2+)-stimulatory activity of the C2A domain of synaptotagmin I. Analyses of the mutant suggested that this novel Ca(2+)-inhibitory phospholipid-binding activity not only mediates docking but also modulates the subsequent fusion of the secretory granules.
PMID:
17182843
[PubMed - indexed for MEDLINE]

PMCID:
PMC1783794

Free PMC Article
http://www.ncbi.nlm.nih.gov/pubmed/24507615
Biophys J. 2014 Feb 4;106(3):741-51. doi: 10.1016/j.bpj.2013.11.4504.

Malli haimasaarekkeen A-solun kaksoismekanismista, jolla glukoosi (sokeri) vaimentaa GLUKAGONIN eritystä

Modeling the pancreatic α-cell: dual mechanisms of glucose suppression of glucagon secretion. Watts M1, Sherman A2.Abstract

 On kyllä ymmärretty hyvin, millä tavalla glukoosi ( sokeri)  aiheuttaa Beta-soluissa INSULIININ erityksen.
Huolimatta vuosien tutkimuksista ei ole kuitenkaan pystytty selvittämään yhtä hyvin A_solujen  GLUKAGONI-eritystä.  On oletettu, että   glukoosi (sokeri) säätelee GLUKAGONIN erityksen  alentamalla johtuvuutta joko  ulosjohtavassa ATP;sta riippuvassa  kaliumkanavassa  (Katp) tai sisävarastoon operoivassa virrassa (SOC) . On kehitetty matemaattinen malli ja tätä oletusta on testattu koe-eläimissä ja todettu että molemmat  mekanismit ovat mahdollisia 
  • The mechanism by which glucose induces insulin secretion in β-cells is fairly well understood.  Despite years of research, however, the mechanism of glucagon secretion in α-cells is still not well established. It has been proposed that glucose regulates glucagon secretion by decreasing the conductance of either outward ATP-dependent potassium channels (K(ATP) or an inward store-operated current (SOC). We have developed a mathematical model based on mouse data to test these hypotheses and found that both mechanisms are possible
 Glukoosin ( sokerin) aineenvaihdunta sulkee  K(atp) kanavat, mikä depolarisoi solun , mutta paradoksisesti vähentää kalsiumin sisäänvirtausta inaktivoimalla VDCC, jännitteestä riippuvat kalsiumkanavat ja natriumkanavat ja vähentää eritystä.  (Komemntti.   Huom tämä vaatii toimivan  solunsisäisen ins- fosfaattiaineenvaihdunnan- sekä PI kalvoliukoiset  että IPx vesiliukoiset molekyylit )
  •  Glucose metabolism closes K(ATP) channels, which depolarizes the cell but paradoxically reduces calcium influx by inactivating voltage-dependent calcium and sodium channels and decreases secretion. 
 Glukoosi(sokeri)aineenvaihdunta  aktivoi myös SERCA-pumput, jotka täyttävät endoplasmista verkostoa ja hyperpolarisoi soluja vähentämällä  sisäänpäin suuntautuvia  SOC-kanavavirtoja ja  jälleen vaimentaa GLUKAGONI-eritystä. Tutkijat  havaitsivat, että nämä kaksi mekansimsi voivat yhdessä vaikuttaa ei-monotonisen riippuvuuden  glukoosi8sokerin) erityksestä, mikä joisan tutkimuksisa on havaittu ja se on vaikutus mitä kumpikaan mekanismi ei yksinään saa aikaan.
  •  Glucose metabolism also activates SERCA pumps, which fills the endoplasmic reticulum and hyperpolarizes the cells by reducing the inward current through SOC channels and again suppresses glucagon secretion. We find further that the two mechanisms can combine to account for the nonmonotonic dependence of secretion on glucose observed in some studies, an effect that cannot be obtained with either mechanism alone.
http://www.cell.com/cms/attachment/576070/4287785/gr1.jpg

Kommenttini.
Vuodelta 2015 valaiseva artikkeli, jossa A-solun glukoosi-6-fosfaattisensori toiminta näkyy
http://www.medbio.info/Horn/Time%203-4/secretion_of_insulin_and_glucagon_nov_2007.htm 
Huom.  Jos insuliinista on vaje, tämäkään glukoosin metaboliitin  tunnistamisprosessi    G6P-muoto) ei ole normaalia.  Siis A-solun normaalitoiminnalle onedellytys betasolun normaali toiminta. joten  virhe betasolutoiminnasa  pahentaa tilannetta  progressiivisesti  käsittääkseni.  Tässä kyllä  tulee mieleen se että  paha exogeeninen  tekijä on ravinnon sokerin liikamäärä eikä sen  nykyiset lievät  rajoitukset  vastaa tilanteen ehdotonta vakavuutta.  Voi vain kuvitella, missä tulehdustilasas kasvavan sukupolven  haimasaarekkeet jatkuvasti ovat.
Diabetekseen  johtavina  tästä saareketasosta voi nähdä monta   exogeenista tekijää.  liika sokeri on yiksi, fytiinin osuuden aliarviointi tai tuntemattomuus on toinen,  rikkiaineenvaihdunnan  hahmottamisen  vaje  kolmas,  energian ylitarjonta kaikissa  energia-aineryhmissä  neljässä,  epäorgaanisen fosfaatin liikakuormitus,   Luuston rikki-typpi-fosfaatti tasapainossakin on jotain, mikä johtaa  kalsiumaineenvaihdunna kaaokseen.