Eräs kuva, jossa on IRF-5.
https://www.ncbi.nlm.nih.gov/pmc/articles/PMC1251617/
Hexosaminitien vääriltä raiteilta muodostunee niitä erittäin vaikeaa koronapandemiaa sairastavien keuhkoja tukkivat hyytelöt ja nesteet . Samalla kun päätie glykolyyttiseen energian luomiseen ohittuu, estyy myös glutamiinin palautuminen aminotyppirikkauteensa. Siis mikään aminohappo ei ota irtoavaa vastaan deaminaation ammoniumia. Korkeassa pitoisuudessa ammonium edistää fruktoosi-6-fosfaatin isomeroitumisia ja myös heksosaminimuodon syntyä. Tässä ei ole glutamiinisyntetaasia. Näin on käynnissä jokin devioitunut tie kohti UDP-GlucNAc (josta on myös mm hyaluronihappoon ym produktiin johtava reitti) ja siinä tiessä sitä metabolinen flux fruktoosi-6-fosfaatin ja kertyvän ammoniumin suhteen. ( Fysiologisesti HBP tietä esiintyy embryon ja munasolun kehityksessä.) Kuitenkaan tien aktivaatio viruksesta ei ehkä kaikilla positiivisilla tee keuhkoon näkyvää tai tuntuvaa muutosta. Voi ajatella, että tämä heksosaminisynteesitien ylipaisuminen ei ole edes viruksen säädeltävissä sitten kun se on alkanut sytokiinimyrskyssä . Arveltavaa on, että virus haluaisi vääntää glukoosiaineenvaihdunnan pentoositielle replikaation edistämiseksi ja muutenkin aminohappojen ja nukleotidien synteesiin kiivaassa translaatiossaan. Tietysti se tarvitsee energia-aineitakin. Tietysti tuollainen alkionaalinen geelinen miljöö voi olla viruksen ohjelmalle kuitenkin suojaa antava, vaikkei varsinainen rakennusaine. Post-covid -vaiheessa vain tulee mieleen, että taitaa olla monilla merkkejä keuhkossaan sars-2 infektion käymisestä, mutta sille tyyppillistä taudinkuvaa tai post-infektiöösiä keuhkostatusta ei kaiketi ole vielä yleisesti luokiteltu. Akuutit muutokset ovat olleet vaikea-asteisessa taudissa suorastaan harvinaisen pahoja ja ihmetystä herättäviä. . Täytyy selata, jos löytyy netistä jälkitaudista yleisesti luokiteltavia muutoksia. Yleisiin keuhkokuvauksiin ei maailman resurssit ja voimat mitenkään koostu vielä. Tässä ihmiskunnan helpotuksen huokauksen ja lepovaiheen hiljaisessa latenssissa voi kuitenkin tapahtua koko ajan eteneviä keuhkomuutoksia kuten fibroosia tai solutason priorisoitumista pahanlaatuisiksi soluiksi tms. Pitäisi olla minimaalista ja kostekonomista ( kuten ruotssalainen sanoo) rutiinia katsoa keuhkostatus, jos henkilöitä ilmenee poliklinikoille pandemian jäteoireiden kanssa. Ehkä pelkkä PEF- tutkimus jo antaa jotakin tietoa, jos on vertausarvoja. BCG rokotuksen olemassolo myös pitäisi ajatella. Maailman kuitenkin ollessa näin kallellaan vielä tuon Ukrainan sodan takia, ei liene mitään mahdollisuuksia tehdä isoja seulontakokeita. Toivottavasti tuberkuloosit kuitenkin saadaan selville. Niitäkin pikku hiljaa on enenemään päin pakoloisten liikehdinnän takia. Toisin paikoin maailmaa on niin kurjaa, että tubi lisääntyy. Se on kurjuuden ja aliravitsemuksen tauteja. Kun katsoo venäläisten kiduttamia ennen hyväkuntoisia sotilaita, voi arvata, miten paljon meille näkymätöntä kurjuutta sota on siellä tekemässä ja ylläpitää nytkin. Siitä kylväytyy koko maailmaan lisää tauteja. Venäjä itse saa niitä niskoihinsa ensiksi ajan mittaan. Muilla onkin WHO:n suositukset kaikesta tiedossa ja hyvä tahto tehdä niiden mukaan.
Ja nyt asiaan:
HEXOSAMINIEN BIOSYNTEESITIEN vikasäätymisessä toimii mm IRF-5. Koska minulla on siitä hyvin vähän tietoa, otan ensin IRF-perheen luettelosta jotain tietoa esiin.
Siteeraamani artikkelin otsikossa mainitsen IRF molekyylit, inteferoneja säätelevien tekijöiden yhden ryhmän. Tuossa hexosaminibiosynteesitien modifioinnissa mainitaan IRF5, IKK, NFkB, TNFalfa , myD88 reseptorisignalointi, ER-stressi ja UPR-tekijöitä, OGT ja entsyymit HBP-synteesin ja glykolyysitien yhtymäkohdasta. Mihin tällä kartalla pystyy vaikuttamaan hexosaminitien kiihtyneen synteesin vähentämiseksi, en tiedä tällä hetkellä. Tietysti tärkeää infektion välttö, rokottautumiset ja yleiset pandemian varalta annetut säädökset.
Koetan hakea vain lähdekuvia, jossa näkyisi usea tekijä. Löydän "IRF-kunnan", jossa on 9 tekijää. Ne ovat erikoistuneet omiin tehtäviinsä luonnollisessa immuunivasteessa. IRF-5, josta etsin nyt tietoja on rakenteeltaan hieman muista eroava pituutensa takia.
https://www.spandidos-publications.com/10.3892/ol.2012.1051 Introduction
The original identification of the first member of
the interferon (IFN) regulatory factor (IRF) family, IRF-1, was
followed by additional studies on type I IFN and IFN-inducible
genes in the IFN system, which is referred to as ‘the IRF kingdom’.
The mammalian IRF family of transcription factors is comprised of 9
members: IRF-1, -2, -3, -4/PIP/LSIRF/ICSAT, IRF-5, -6, -7, -8/ICSBP
and -9.
https://www.spandidos-publications.com/article_images/ol/5/2/OL-05-02-0417-g00.jpg
IRFs contain an amino-terminal DNA
binding domain (DBD) which is characterized by a series of five
well-conserved tryptophan-rich repeats (w). The
DBD forms a helix-turn-helix domain and recognizes a DNA sequence
similar to the IFN-stimulated response element (A/GNGAAANNGAAACT)
(5). The carboxyl-terminal regions
of IRFs are less well-conserved and mediate interactions with
additional IRF members, transcription factors and cofactors,
conferring specific activities upon each IRF (Fig. 1)
Although IRFs were first characterized as transcriptional
regulators of type I IFNs and IFN-inducible genes, more recent
studies indicate that this family is important for the regulation
of oncogenesis beyond the IFN system.
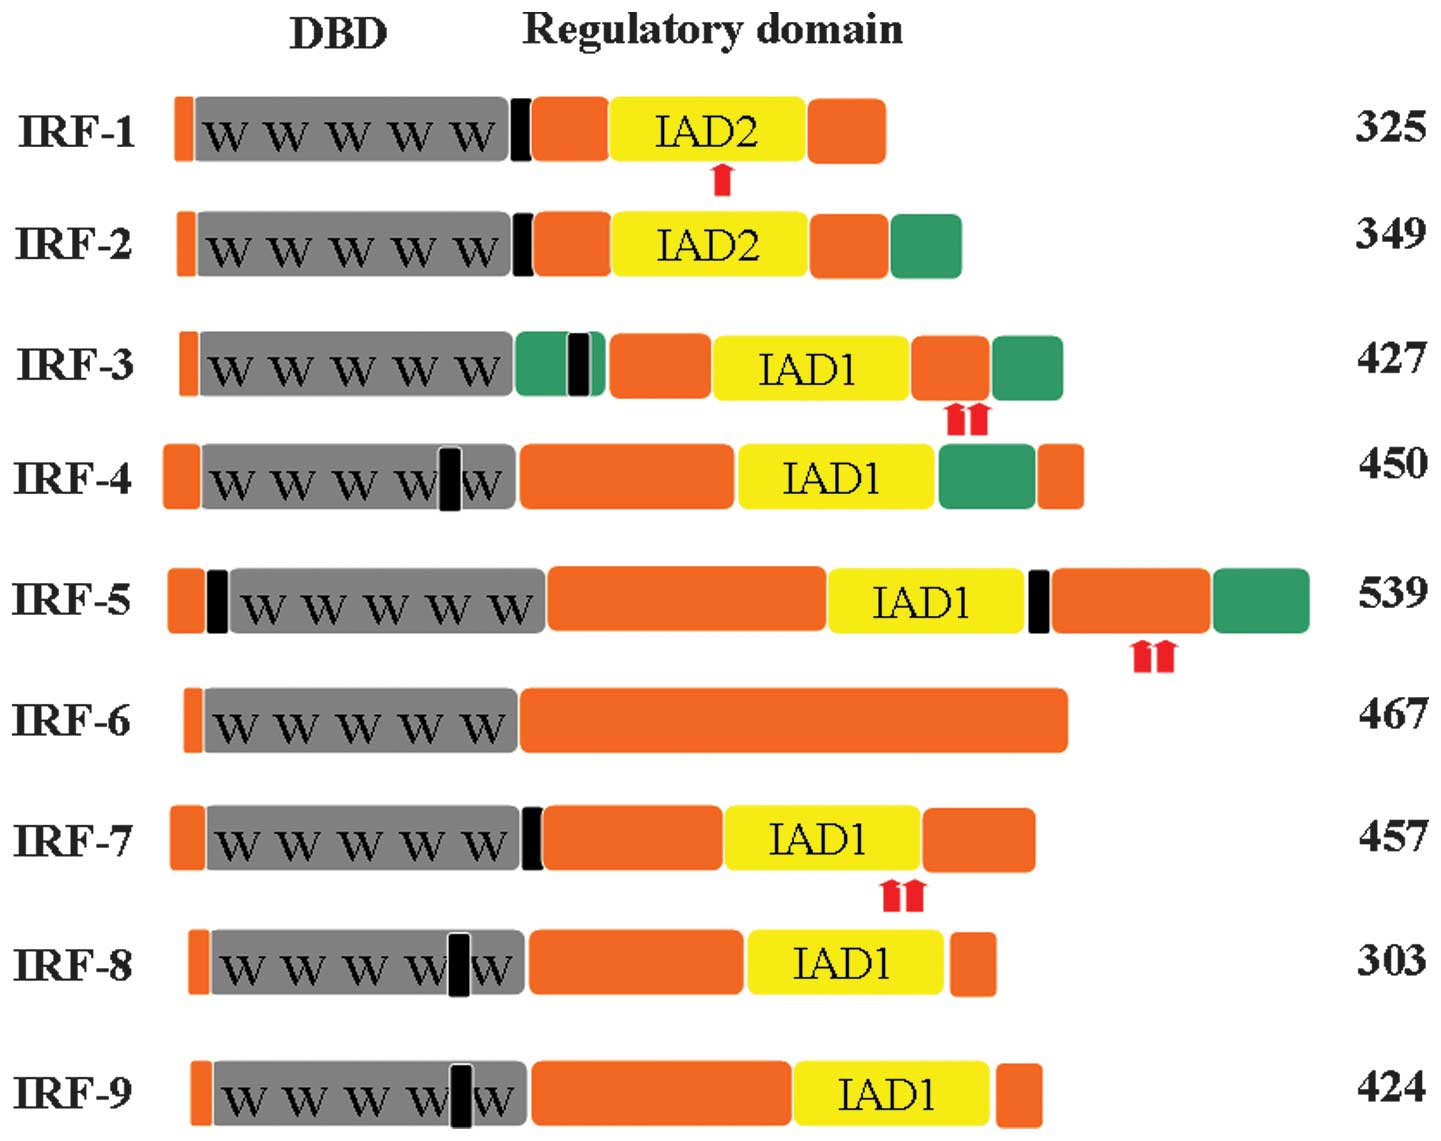
Figure 1. - Structure of IRFs. All IRFs contain
an amino-terminal DNA binding domain (DBD) that is characterized by
a series of five well-conserved tryptophan-rich repeats (grey) and
a regulatory domain (yellow). The DBD forms a helix-turn-helix
domain and recognizes a DNA sequence similar to the IFN-stimulated
response element. The majority of IRFs also contain an
IRF-association domain (IAD) of type 1 (IAD1) or type 2 (IAD2).
Specific IRFs contain repression domain(s) (red) and a
nuclear-import signal(s) (black). For IRF-1, 3, 5 and 7, the mark
of red arrows show that activity depends on phosphorylation. The
number of amino acids of each IRF is indicated. IFN, interferon;
IRF, IFN regulatory factor.
- (Kommentti. Suomennosta: IRF-peptidin rakenne: Kaikilla niillä on N-päädyssään eli aminoterminaalissaan DNA:ta sitova domeeni (DBD) (, joka on kuvassa harmaa) ja säätelyllinen domeeni (keltainen). DNA:ta sitova domeeni (DBD) on helix-kääntymä-helix-muotoinen (coiled coil) ja tunnistaa DNA-sekvenssiä, joka on interferonille stimuloituvan vaste-elementin (IRE) kanssa samanlainen. Useimmilla IRF-peptideillä on myös IRF-assosiaatiodomeeni 1 tai 2 (IAD1, IAD2) Spesifisillä IRF-proteiineilla on repressiodomeeninsa (punainen) ja tumaan kuljettava signaali (NLS) (musta). Seuraavista, IRF-1, IR-3, IRF-5 ja IRF-7, mainitaan niiden punaisen merkin tarkoittavn, että niiden aktiivisuus riippuu fosforylaatiosta. Päädyssä on peptidin aminohappojen lukumäärä mainittuna. IFN = interferoni. IRF = interferonin säätelytekijä.
- IRF-1 mainittiin IRF-perheen ensimmäisenä jäsenenä, joka saatiin eristettyä siksi, koska sillä oli affiniteettia IFN beetan promoottoriin. Interferoni, dsDNA, sytokiinit ja spesifiset hormonit indusoivat sen muodostusta. Indusoitunut IRF-1 aktivoi kohdegeenejä, mikä johtaa soluproliferaation estymiseen ja solun apoptoosin stimuloitumiseen, mikä vähentää onkogeenisyyden mahdollisuuksia. Lisäksi sillä on osuutta NK.solujen kehittymiseen sekä Th1 ja
CD8+ T solujen erilaistumiseen. .
- IRF-2 kiinnittyy samaan DNA-sekvenssiin kuin IRF-1, mutta säätää alas IRF-1 kohdegeenit tai estää niiden aktivoitumisen. On kertyvää näyttöä siitä, että IRF-1 on antionkogeeninen ja IRF-2 onkogeeninen luonteeltaan.
- IRF-4 on tutkittu onkogeenisyyden suhteen ja onkogeneesiä on raportoitu EBV viruksen transformoimissa imusoluissa ja HTLV-1 viruksen indusoimassa leukemogeneesissä.
- Mutta IRF-4 yksinään ei pystynyt aihuttamaan onkogeneesiä
transgeenisessä hiiressä, jonka imusolut ilmensivät ylimäärin IRF-4
interferoni- säätelijää. Mahdollisesti IRF-4 säätelee solukasvua
kohdentamalla vaikutusta EBV-transformaation aikana pro-apoptoottiseen
IRF-5-interferonisäätelijään.
- IRF-8 interferonisäätelijän on huomattu ilmentävän tuumorinvastaista
aktiivisuutta solukasvun erilaistumisen ja apoptoosin suoralla
kontrollilla ja tuumorinvastaista immuniteettiä moduloimalla.
- IRF-6 saattanee myös toimia tuumorisuppressorina maspin-interaktionsa takia. Maspin on eräs tuumorisuppressorigeeni.
- IRF-perheen jäsen IRF-7 välittää EBV transformaatioprosessia EBV-virukseen assosioituvan lymfooman patogeneesissä, mikä on viite tämän IRF-jssenen onkogeenisestä luonteesta
IRF-1 was the first member of the IRF family to be
isolated by virtue of its affinity to specific DNA sequences in the
IFN-β promoter (7). The molecule is
markedly induced by IFN, double-stranded RNA (dsRNA), cytokines and
specific hormones. Induced IRF-1 activates target genes leading to
inhibition of cell proliferation and stimulation of cell apoptosis
(5) .IRF-2 binds to the same DNA
sequences as IRF-1 but downregulates or blocks the activation of
IRF-1 target genes. Accumulating evidence indicates that IRF-1 and
IRF-2 have antioncogenic and oncogenic potentials, respectively
(6). A correlation between IRF-4
and oncogenesis has also been reported in Epstein-Barr virus
(EBV)-transformed lymphocytes and HTLV-1-induced leukemogenesis
(8,9). Notably, IRF-4 alone is not sufficient
for oncognesis in transgenic mice overexpressing IRF-4 in
lymphocytes. IRF-4 may regulate cellular growth by targeting
pro-apoptotic IRF-5 during EBV transformation. In addition, IRF-8 has been revealed to exhibit antitumor activity
through direct control of cell growth, differentiation and
apoptosis and modulation of antitumor immunity (12). IRF-6 may also act as a tumor
suppressor via its interaction with maspin, a tumor suppressor gene
(13). An additional member of the
IRF family, IRF-7, mediates the EBV transformation process in the
pathogenesis of EBV-associated lymphomas indicative of oncogenic
properties (14).
