Etiketter

Summa sidvisningar

Leta i den här bloggen

lördag 19 november 2016

Insuliinireseptorin ja sokerin soluun siirron toimintaperiaatteista opetusvideo netissä:

Tämä on selkeä diasarja ja englantilainen (intialainen) teksti:
https://www.youtube.com/watch?v=kWgrc1lVQqg 
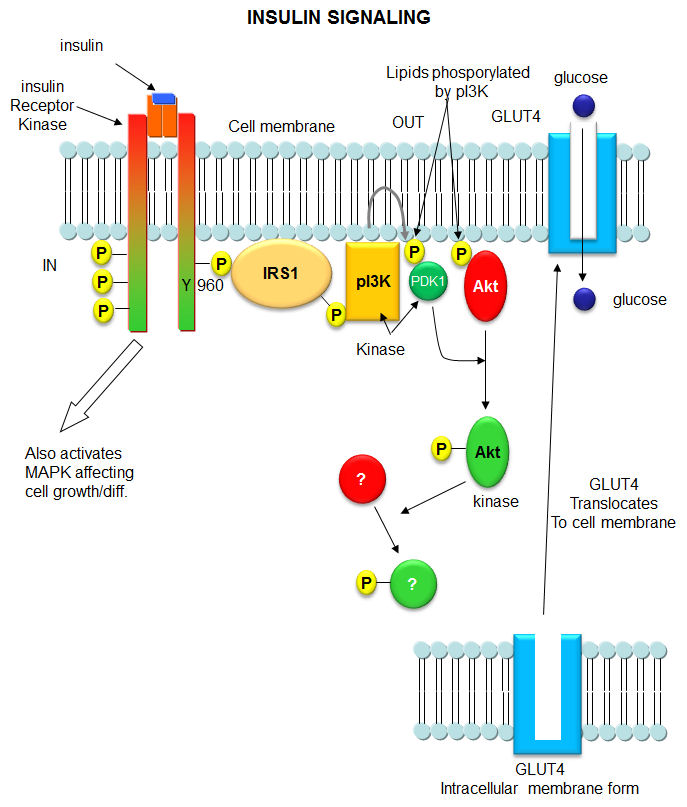
Se esittää insuliinin pääfunktiot silloin kun glukoosia on runsaasti tai  ruokaiakojen välilä vähemmän veressä. Lisäksi se osoitaa insuliiniresptorin   aktivoimistiet solun sisällä: PI3K-väliteinen tie  aktivoi  solupintan GLUT4 lihaksessa ja silloin glukoosia pääsee lihassoluun.
MAPK välitteinen tie  tehostuu lihastreenauksissa ja se johtaa myös lihasten  voimistumiseen ja kasvuun.

https://www.youtube.com/watch?v=CUXQsAdxuYw
Tässä selvitetään Insuliinireseptorin aktivoituminen,
Insuliinireseptorisubstanis-1 , IRS-1  on adaptoriproteiini ja liittyy aktivoituneeseen  reseptoriin. Tämä  liittymä stabniloi tapahtumille kohdan ja alsutan, jotta muita proteiinikaskadi  voi  alkaa kiinnittyä ja asteitan aktivoitua. Tämä alkutapahtuma  on kuin asettaisi sähkötöpselin kontaktiin ja siten alkaa tapahtua kalvossa ja solun sisällä.
 Sokeri ei virtaa insuliinireseptorissa itsessään,  kuten ei myöskään   "sähkön vaikuttama tapahtuma  ole  kosketinreiässä ja töpselissä",  vaan perifeerisessa laitteessa kuten telkkarissa tai kahvifiltterissä jne. .  Tässä "perifeerinen laite" solussa  on GLUT4- moduli, jolla  siirretään  glukoosi sisälle soluun.
Kun ei ole glukoosia tarjolla ja insuliinia ei täten  ole liikkeellä, laite otetaan " irti töpselistä" ja se - tässä tapauksessa painuu takaisin soluliman puolelle.

( Niitä tapahtumia adaptoriporteiinin kiinnittymsien jälkeen on mm.  alakuvassa näkyvät seikat:
kalvolipidin  fosforyloiva aktivoitu kinaasi PI3K kiinnittyy kohdemolekyyliin PIP2  ja lisää siihen yhden fosfaatin ja tekee sen PIP3- muotoiseksi. PIP2  on rakennetta PI(4,5)P2  ja PIP3 on rakennetta (PI(3,4,5)P3.  Tämä liukuu eteenpäin kalvossa   entsyymien  saataville .
PDK1  ja AKT aktivoituvat.
ne   yhteistyönä  vaikuttavat että saadaan   glukoosin kalvokuljetusta aikaan:  GLUT4 reseptorin  siirtymän solulimasta   kalvoasemaan  ja sitten soluun alkaa virrata glukoosia sen avulla.Akt vaikuttaa myös, että glukoosi saadaan fosfryloitua ja  siten saadaan glykogeenia lihakseen)
Relaterad bild


fredag 18 november 2016

Väitöstilaisuus (Daniel Nilsson) : insuliiniherkkyyden ja insuliiniresisenssin taustageenejä koeteltiin koe-eläimessä.

*Forkhead genes in adipocytes and podocytes
Nilsson, Daniel
2016-11-18 ( Tämän väitöstilaisuuden kävin kuuntelemassa klo 13 -17 välillä)

Taustaterminologia  Forkhead geenit. Näistä löytyy luettelo  netissäkin: ne kuuluvat transkriptiotekijöihin, joiten joukko on nykyään jo 2-3000, eikä 1500, kuten  edellisessä muistiinpanossani mainitsin blogiin. Näsitä on runsaat  40 Forkhead-geenejä, ryhmän jäseniä. Näistä tutkija valitsi FOXC2 ja FOXF2 lähemmin tutkittavaksi ja niillä on  vastakkaisia metabolisia vaikutuksia.
Työ oli tehty hiirillä, joiden vastaavalla FOXC2.geenillä on ihmisgeenin kanssa 85% homologia.
 https://en.wikipedia.org/wiki/FOX_proteins
Otan tässä kuitenkin esiin tiedot näistä ihmisgeeneistä .

  •  Geeni FOX2F. Sijainti kr.625.3.  muut nimet FKHL6, FREAC, FREAC-2. Tätä lötyy keuhksota ja placentasta.   "FOXF2 encodes forkhead box F2, one of many human homologues of the Drosophila melanogaster transcription factor forkhead. FOXF2 is expressed in lung and placenta, and has been shown to transcriptionally activate several lung-specific genes. [provided by RefSeq, Jul 2008]"
Lisätietoa tästä geenistä:  https://www.ncbi.nlm.nih.gov/gene/2295

Siteeraan FOXC2 geenin tietoja tähän alle.
  • Geeni FOXC2. Sijainti kr.16q24.1
Muut nimet:  LP, KFH1, MFH-1, FKHL14.
Löytyvää tekstiä: "This gene belongs to the forkhead family of transcription factors which is characterized by a distinct DNA-binding forkhead domain. The specific function of this gene has not yet been determined; however, it may play a role in the development of mesenchymal tissues. [provided by RefSeq, Jul 2008]"
https://www.ncbi.nlm.nih.gov/gene/2303 

Related articles in PubMed
we propose that Foxc2 is functionally maintained in the cytoplasm of normal epithelial cells by CK2alpha/alpha'-mediated phosphorylation at serine 124, which is dependent on proper targeting of the holoenzyme via the CK2b regulatory subunit.

Maailman diabetespäivä. Dosentti Stig Attvall kirjoittaa lääkärilehteen.

Världsdiabetesdagen


Av: Stig Attvall Docent, överläkare
Diabetescentrum, SU Sahlgrenska Göteborg

-------


Världsdiabetesdagen inleddes 1991 efter ett initiativ av Världshälsoorganisationen (WHO) för att uppmärksamma att diabetes ökar stort i världen och att också bättre diabetesvård behövs. Från 2006 deltar även FN i arbetet kring att förebygga diabetes och komplikationer. Att dagen firas 14/11 beror på att Frederick Banting, en av upptäckarna av insulinet, föddes den 14 november 1891.

"Balansera rätt i diabetesvården" är temat i år på den traditionella heldagen som Nationella Diabetesteamet, paraplyorganisation för föreningar som innefattar personer med diabetes och föreningar för deras professionella rådgivare, och Dagens Medicin arrangerar 14 nov. I år har turen kommit till Umeå för att stå värd för arrangemanget.  Programmet tar sikte på de viktigaste utmaningarna inom diabetesvården som e-hälsa och framtidens läkemedel.

Nationella Diabetesteamet presenterar Röd Bok under dagen. Den tar fasta på 10 punkter om hypoglykemi, d v s mycket låga blodsocker. Röd Bok finns att läsa som 18 sidig pdf på www.dagensdiabetes.info och ger läsaren ökad kunskap kring hypoglykemi och diskuterar också förebyggande åtgärder mot hypoglykemi. Att få lågt blodsocker är en av de största rädslorna för personer med diabetes. Hypoglykemi orsakas av själva behandlingen, antingen insulinbehandling eller viss form av tabletter.

Läs hela dockumentet om Världsdiabetesdagen
>>

torsdag 17 november 2016

(II) Beetasolu diabeteksen patogeneesissä. Monet geenit osallisia ( Prof. H. Mulder, 2015)

(II)  Monet geenit osallistuneena

Professori H. Mulderin tekstistä:suomennosta
Mullistava tekninen kehitys tapahtui tieteellisessä tutkimuksessa 2000-luvun aikana ja silloin tuli mahdolliseksi tunnistaa kyseessä olevia geenejä. Kokogenomin laajuiset tutkimukset (GWAS, genome-wide association studies) ovat näihin mennessä olleet vahvana apuna tunnistettaessa pariakymmentä geeniä, joiden osuutta tyypin 2 diabetekseen ei ole aiemmin suurelta pystytty ymmärtämään. Näin on globaalien ja edellytyksettömien geneettisten analyysien suorittamiskapasiteetti suurista hyvinluonnehdituista potilasmateriaaleista valtavasti kasvanut. Ruotsalaista tutkimusta ilahduttaa, että Lundin Yliopiston Diabeteskeskuksen Leif Groopista on tullut tällä alalla yksi maailman johtavista tutkijoista. Kirjassa esitetään geenien yleiskatsaus taulukkona. Tässä kirjan kappaleessa kuvataan millä tavoin tällainen kehitys on syventänyt ymmärrystämme taudin synnystä. Professori H Mulder keskittyy tässä esityksessä niihin geeneihin, joista on saatu suurinta oivallusta siitä, miten ne osallistuvat 2-tyypin diabeteksen patogeneettisiin prosesseihin.
Taulukossa mainitut geenit: Osa* tarkemmin käsiteltyä tekstissä (Kommenttini: haen PubMed hakulaitteella geenien sijainnit ja viitteen niistä 17.11. 2016 )
Geenin merkintä, nimi, funktio ja tyyppi.
  1. *TCF7L2 Transcription factor 7-like 2 (T-cell specific, HMG-box) . Transkriptiotgekijä7:n kaltainen 2, T-soluspesifinen HMG-box. Transkriptiotekijä.
  2. *NOTCH2 Notch homolog 2. Transkriptiotgekijä.(tyyppi beta)
  3. *HFN1B (TCF2) hepatocyte nuclear factor 1-beta (Transcriptionfactor 2). Maksasolun tumatekijä 1-beta. Transkriptiofaktori2. (Tyyppi beta)
  4. WFS1 Wolfram syndrome 1. Transkriptiotekijä.
  5. *PPARgamma. Peroxisome proliferator-activated receptor gamma. Transkriptiotekijä.
  6. JAZF1, JAZF 1. Sinkkisormiproteiini. Transkriptiotekijä.
  7. CDKN2A/B Cyclin-dependent kinase inhibitor 2A/B. Sykliinistä riippuvan kinaasin estäjä 2A/B. Solusyklin säätely. (Tyyppi beta)
  8. CDKAL1 CDK5 regulatory subunit associated protein 1-like 1. Solusyklin säätely (Tyyppi beta)
  9. *SLC30A8. Solute carrier family 30 (Zinc transporter , ZNT8), member 8. Jonikanava
  10. *IGF2BP2 Insulin-like growth factor 2 mRNA binding protein 2. Insuliininkaltaisen kasvutekijän 2 mRNA.ta sitova proteiini. Kasvu. (Tyyppi beta)
  11. *HHEX/IDE hematopoietically expressed homeobox/Insluin-degrading enzyme. Hematopoieetisesti ilmenevä homeobox/ isnuliinia hajoittava entsyymi . Kasvu (Tyyppi: beta)
  12. *FTO Fat mass and obesity associated , Rasvamassaan ja obesitakseen liittyvä. Kasvu (tyyppi IS)
  13. *CDC123/*CAMK1D Cell Divisiobn Cycle protein 123 homolog/calcium/Calmodulin-Dependent Kinase 1D. Solunjakautumissyklin proteiini 123 homologi/ kalsium/kalmoduliinista riippuva kinaasi 1D (tyyppi beta)
  14. *ADAMTS9, ADAM metallopeptidase with thrombospondion type 1 motif 9. Kasvu.
  15. *THADA, Thyroid adenoma associated, Kilpirauhasadenomaan liittyvä. Kasvu.
  16. *TSPANS/*LGRS , Tetraspanin 8/leucine-rich repeat-containing G-protein-coupled receptor , Tetraspaniini8/Leu-pitoinen toistojakso, josa on G-proteiiniin kytkeytynyt resptori. Kasvu.
  17. *KCNJ 11, Potassium inwardly-rectifying channel, subfamily J, member 11 (KIR 6.2.), Kaliumkanava KIR 6.2. jonikanava 8Typpi beta)
  18. *KCNQ1 , Potassium voltage-gated channel, KQT-like subfamily membre 1. KQT:n kaltainen alaperhe , jäsen 1. Kaliumkanava , jonikanava (Tyyppi: beta) ,
  19. *MTNR1B, Melatonin receptor 1B, Melatoniinireseptori 1B. Hormonireseptori. (Tyyppi: beta)
  20. *ADRA2, Adrenergic alpha-2A-receptor. Adrenerginen 2A-reseptori. Hormonireseptori. Tyyppi Beeta-solu.
  21. IRS1, Insulin receptor substrate 1, Insuliinireseptorisubstraatt1-1. Laituroiva valkuaisaine. N ( Tyyppi IS, insuliiniherkkyys)
Professori H Mulder käsittelee tässä kirjan kappaleesa nämä 21 geeniä niiden funktioiden mukaisissa ryhmissä.
a) Transkriptiotekijät ja 2-tyypin diabetes mellitus
b) Solukasvu ja 2-tyypin diabetes
c) Jonikanavat ja 2-tyypin diabetes
d) Hormonireseptorit ja 2- tyypin diabetes
e) Yhteenveto ja tulevaisuudenkatsaus.

(kommenttini Suomennan samassa järjestyksessä lähtemättä syvemmin seulomaan kutakin geenialuetta paitsi hakemalla niitten viitteen)..

a) Transkriptiotekijät ja 2-tyypin diabetes mellitus

Transkriptiotekijöillä on tärkeää osuutta, kun geenien transkriptio säätyy.
( Huom: transkriptiotekijöitä on ylipäätänsä yli 1500!).
Tällä on tietysti yleisbiologista merkitystä, mutta erityisen merkitsevää on, miten beetasolujen kehitys ja toiminta kontrolloituu. Kaksi tärkeää olosuhdetta valaisee tätä asiaa.Ensinnäkin tutkimuskentällä on lisääntyvässä määrin kiinnitetty huomiota beetasolumassan (varsinainen solumäärän) alentumiseen. Tyypin 2-potilailla on kahdessa tuoreessa tutkimusaineistossa todettu vähentynyt beetasolumassa, kun on käyty tarkasti läpi hyvin karakterisoituja obduktioaineistoja. Tämä on varsin selvää, kun otetaan huomioon todennäköinen henkilöillä esiintynyt insuliiniresistenssi. Itseasiassa sellaisen tilanteen olisi pitänyt vaikuttaa lisääntynyttä beetasolumassaa, mikä olisi kompensoinut lisääntyneen insuliinintarpeen. Näistä oivalluksista huolimatta on myös selvää, että pelkkä beetasolumassan väheneminen ei ole riittävä syy aiheutamaan 2-tyypin diabetesta.
Toiseksi nykyisin ollaan hyvin sillä kannalla, että sikiökehityksen aikaiset häiriöt altistavat edeltä käsin yksilöä myöhemmän elämän aikaisen diabeteksen kehittymiseen. Sodan loppuvaiheen nälkävuosien aikana Länsi-Hollannissa syntyneistä yksilöitä tehdyt tutkimukset antavat tähän taustaa. Kohdunsisäisesti koettu malnutritio katsotaan syyksi ja se johtaa epigeneettisiin muutoksiin. Tästä arvellaan johtuneen beetasolujen kyvyttömyyden sopeutua lisääntyneeseen aineenvaihdunnallseen kuormitukseen. Edelleen tätä ilmiötä selitetään niin, että jos on primääriä geneettistä edeltävää altistusta beetasolujen häiriintyneelle sikiöaikaiselle kehitykselle, yksilöt tulevat olemaan aikuisena herkempiä diabetogeenisille tekijöille. Transkriptiotekijöiden patogeneettinen merkitys beetasoluille tulee ilmiselväksi, kun tiedetään, miten suuri merkitys on meissä olevien resurssien, beetasolujen, määrällä
tai meidän kehomme kyvyllä lisätä betasolujen määrää ja /tai niiden toimintaa metabolisessa stressissä – ja ylipäätänä onko beetasolumme alunalkaen kehittyneet normaalisti.
  • Geeni TCF7L2 (Sijainti: Kromosomi 10q25.2-q25.3)
 https://www.ncbi.nlm.nih.gov/gene/6934
Kaikista tähän asti tunnistetuista geeneistä TCF7L2 on sellainen geeni, jolla on vahvinta yhteyttä 2.-tyypin diabetekseen. TCF7L2 on Wnt-signalointiketjua ja lähinnä syöpätutkijat ovat huomioineet sen. Tämä Wnt-signalointiketju osallistuu embryogeneesiin, alkion kehitykseen ja morfogeneesiin ja ollaan sitä mieltä, että sillä on osuutta syövän synnyssä. Usea geneettinen poikkeus TCF7L2 geenin läheisyydessä on näyttänyt liittyvän 2-tyypin diabetekseen. Aivan tarkasti ei tiedetä, miten tämä geeni osallistuu 2-tyypin diabetekseen , mutta selvää on että insuliinin vapauttamisessa on häiriötä.

(Oma muistiinpanoni Wnt-signaloinnista: http://solusykli.blogspot.se/search/label/Wnt%20tie)

  • Geeni NOTCH2, Notch homolog 2.. Sijainti: Kr. 1q12)
Notch2 on toinen geeni, joka on liittynyt 2.-tyypin diabetekseen. Mikä osuus NOTCH2-geenillä on ei ole selvitetty, muta NOTCH-signalointi on hyvin tärkeä alkioajan kehityksessä monen solujärjestelmän alueella ja niihin kuuluu myös beetasolut. NOTCH-proteiinit ovat transmebraanisia ja aktivoituvat useista ligandeista. Aktivoitumisesta johtuu proteiinin solunsisäisen domeenin pilkkoutuminen irti ja translokoituminen solutumaan, jossa se vaikuttaa transkriptioaktiivisuutta.
  • Geeni HNF1B (TCF2)    Sijainti: Kr. 17q12.
HNF hepatosyytin tumatekijä on osallinen MODY-tyyppisen diabeteksen syntyyn.
Otsikon geeni HNF1B aiheuttaa MODY5 tautia ja sen on osoitettu osallistuvan myös 2-tyypin diabetekseen. HNF1B tekee dimeerin HFN1A geenin kanssa ja sillä katsotaan olevan osuutta haiman beetasolujen alkiokehityksen aikana. HNF- proteiinit näyttävät myös yleisesti osallistuvan transkriptionaaliseen säätelyyn aikuisen beetasoluissa. Ne kontrolloivat useiden sellaisten geenien ilmenemää, jotka ovat tärkeitä beetasolun aineenvaihdunnallisissa prosesseissa.

( Kommentti: Otan tässä varmuuden vuoksi myös ihmisen geenin
HFN1A esiin: Sijainti: Kr. 12q24,31
IDDM20, MODY3.
HFN4A. Sijainti: Kr. 20q13.12.
MODY, MODY1.

  • Geeni PARG, PPARgamma.  Sijainti:  Kr.3p25.2.
PARG-geeni tunnistettiin ensiksi kandidaattigeeneihin perustuvalla menetelmällä. Sittemin on vahvistettu sen liittymä 2-tyypin diabetekseen useissa kokogenomin laajuisissa analyyseissä (GWAS) Muista 2-tyypin diabeteksen transkriptiotekijägeeneistä poiketen PARG -geeni näyttää olevan tärkeämpi insuliinin kohdekudosten transkriptionaalisessa säätelyssä. Ennen kaikkea rasvakudoksen adiposyyttien aineenvaihduntaa ja fenotyyppiä (ilmiasua koodaa PARG.-geeni. Näitä reseptoreita (peroxisomiproliferaattorin aktivoimia reseptoreita ,PPAR) aktivoi mm eräs lääkeryhmä, jolla on nykyään suhteellisen laaja käyttö lisävalmisteena 2-tyypin diabeteksessa- Nämä lääkkeet ovat tiazolidiinidioneja Nämä lääkkeet lisäävät insuliiniherkkyyttä, mutta niitä pitää käyttää varovaisesti, koska ne voivat aiheuttaa sydämentoiminnan vajavuutta.


b) Solukasvu ja 2-tyypin diabetes

Kuten edellä on kuvattu beetasolumassalla , todennäköisimmin solujen lukumäärällä - on patogeneettistä osuutta 2-tyypin diabeteksen esiintuloon. Sentakia ei ole kummallista, että joukko uusia diabetekseen liittyvistä geeneistä osallistuu solun kasvuun, mikä käsittää solusyklin säädön. Insuliinilla itsellään ja todennäköisesti myös insuliininkaltaisilla kasvutekijöillä (IGF-1 ja -2) on beetasolussa reseptoreita ja siten ne voivat säädellä beetasolu- funktiota ja lukumäärää – tämä käsitys on yhä laajemmin hyväksytty tällä tutkimusalueella. Jos hiireltä vaimennetaan nämä reseptorit kokonaan, niin monessa tapauksessa kehittyy diabetes. Se riippuu beetasolujen puutteellisesta kehityksestä ja toiminnasta.
  • Geeni IGF2BP2.  Sijainti:  Kr. 3q27.2.
Tämä geeni on liitetty myös 2-tyypin diabetekseen. Sen koodaama tuote sitoutuu IGF-2 proteiinin mRNA: molekyyliin (5´UTR) ja säätelee translaatiota. Ei ole selvitetty, miten se osallistuu 2-tyypin diabeteksen kehitykseen.

Muiden geenien katsotaan myös omaavaan jotain osa kasvussa ja niitä on assosioitu 2-tyypin diabetekseen, muta ei tiedetä missä tämä kytkeytymä tapahtuu. Nämä geenit ovat :
  • Geenit HHEX/IDE.   Sijainti: Kr. 10 q23.23
Mitä tuolee HHEX/IDE-polymorfiaan on epäselvää, mikä kymmenennen kromosomin kohta (locus) vaikuttuu. HHEX on eräs transkriptiofaktori, joka osallistuu alkion kehitykseen. IDE-geeni (insuliinia hajoittava entsyymi) on mielenkiintoinen kandidaattigeeni, koska sen tuote on entsyym (insulolysiin)i, joka ilmentyy maksassa ja pilkkoo insuliinia.

Geeni HHEX   Sijainti: Kr. 10q23.33
Geeni IDE   Sijainti Kr: 10q23.33,. Insulolysiini. Sinkkimetallopeptidaasi.

  • Geeni FTO Sijainti Kr. 16q12.2
FTO-geeni havaittiin alunperin 1-tyypin diabeteksen kokogenomin laajuisissa analyyseissä (GWAS) , mutta pian havaittiin, että tämängeenin vaikutus välittyi alttiutena ylipainon kehkeytymiseen ja täten insuliiniresistenssille. Sentakia tästä geenistä on puhuttu pikemminkin obesitasgeeninä eikä se todennäköisesti vaikuta suuremmassa määrin suoraan betasoluun.
Geeni FTO  alfaKG:sta riippuva dioxygenaasi. Vahva assosiaatio BMI:hin, obesitasriskiin, 2-tyypin diabeteksen riskiin. https://www.ncbi.nlm.nih.gov/gene/79068

  • Geenit CDC123/CAMK1D.   Sijainti kromosomissa 10.
Nämä geenit koodaavat erästä proteiinia, joka kontrolloi solusykliä.

Gene CDC123.  Sijainti: Kr. 10p14-p13.
Gene CAMKID, Sijainti: Kr. 10p13.
Seriinithreoniinikinaasien alaperhettä
  • Geeni ADAMTS9.  Sijainti: Kr.3p14.1
(A Disintegrin-like and Metalloproteinase with ThromboSpondin type 1 motif 9)
mm estää angiogeneesiä. https://www.ncbi.nlm.nih.gov/gene/56999
  • Geeni THADA, (Armadillo repeat Containing ARMC13). Sijainti:  Kr.2p21.
https://www.ncbi.nlm.nih.gov/gene/63892 SNP (= yksittäiset nukleotidipolymorfismit) johtavat 2-tyypin diabetekseen, polycystisen ovarion oireyhtymään,. DeathReceptor-tievälitteisyys ja apotosis
  • TSPAN8/LGR5  Sijainti Kr. 12q21.1.
Geeni TSPAN8, SijaintiKr. 12q21.1
Solupintaglykoproteiini. Kuuluu TM4-superperheeseen .Esiintyy kompleksina integriinin kanssa. Useissa sýövissäesiintyvä.
Geeni LGR5, Sijainti Kr. 12q21.1.
7-transmembraanireseptori GPCR-superperhettä, postembryonaalisesti tärkeä. Tärkeä suolen kantasoluille. https://www.ncbi.nlm.nih.gov/gene/8549

  • Geeni CDKAL1 , sijainti Kr.6p22.3. Kuuluu metyylitiotransferaasiperheeseen. Assosioidaan 2-tyypin diabetekeen. Kytkeytymä tuntematon.

c) Jonikanavat ja 2-tyypin diabetes

(Beetasolu on verensokeripitoisuuden suora ja herkkä  sensori täten!)
Yhteinen piirre beetasolulle ja hermosolulle neuronille on se, että ne molemmat ovat elektrisesti ärsyyntyviä Ainutlaatuista beetasolulle taas on se, että plasmakalvon depolarisoituminen ja sitä seuraava insuliinin exosytoosin (solusta poistumisen) aktivoituminen kontrolloituvat solunsisäisillä aineenvaihdunnallisilla muutoksilla. Glukoosi otetaan niin muodoin sisään beetasoluun suhteessa sen solun ulkoiseen pitoisuuteen. Sokerin pilkkoutuminen glykolyysissä ja sitten edelleen mitokondrian sisällä kehkeyttävät metabolisia signaaleja. Ne triggeröivät ja vahvistavat insuliinin vapauttamista solusta.
Tärkein aineenvaihdunnallinen kytkin(vaihde)tekijä on adenosiinitrifosfaatti (ATP energiapakkaus). Sen muodostuminen heijastaa metabolista aktiivisutta beetasolussa glukoosialtistuksen jälkeen. Kytkentälinkki beetasolun aineenvaihdunnan ja kalvopotentiaalin kesken muodostuu siten, että se kaliumkanava (jonikanava) joka vastaa solun lepopotentiaalista, inaktivoituu ATP:n vaikutukssta. Kun ATP.stä riippuvainen kalium(+) jonikanava sulkeutuu, vähentyy kalvon polarisoituminen kunnes kynnysarvo jännitteelle herkissä kalsiumkanavissa (VDCC) on saavutettu. Silloin nämä kanavat aukeavat ja aktiivia kalsium(2+) jonia virtaa sisään beetasoluun ja insuliinin vapauttaminen ulos solusta (exosytoosi) alkaa. ATP.stä riippuvaa kalium(+) kanavaa koodaa geeni KCNJ11. Sekin tunnistettiin ensiksi tyypin 2 diabetekseen liittyvänä geeninä kandidaattigeenimetodilla. Usea GWAS tutkimus on voinut vahvistaa 2-tyypin assosioitumisen niin PARG-geeniin kuin KCNJ11-geeniinkin. , Vielä ei ole vahvistettu KCNJ11-geenin polymorfian osuutta diabeteksen kehittymisessä.  Lisäksi eräs toinen kalium(+) jonikanava on liittynyt 2-tyypin diabetekseen. Tämä on KCNQ1. Senkin roolia beetasolussa on vielä epäselvä.
  • Geeni KCNJ11. Sijainti: Kr. 11p15.1.
Tämän yksi nimi on MODY13.
  • Geeni KCNQ1 .Sijainti: Kr. 11p15.5-p15.4.
Tämän yksi nimi on LQT, LQT1 pitkä GT oireyhtymä.

  • Geeni SLC30A8. Sijainti Kr.8q24.11.
SL30A8 koodaa erästä Zn-kuljettajaa ja se on äskettäin assosioitu 2-tyypin diabetekseen. Se on hyvin tunnettu siitä, että insuliinia varastoidaan eritejyväsiin hexameerina, joka on sitoutunut sinkkiin. Sijainti granuloissa, jyväsissä, tarkoittaa, että sinkkiä vapautuu samalla, kun insuliinia vapautuu. On näyttöä siitä, että sinkillä voisi olla säätelyllistä osuutta Langerhansin saarekkeissa. Signaali voisi välittyä suoraan beetasolujen kautta, esim sinkin kuljettajan välityksellä tai glukagonia tuottavien A-solujen kautta.
Glukagonilla on hyvin dokumentoitu stimuloiva vaikutus beetasolujen insuliinin vapauttamiseen. Eräs hyvin kiinnostava löytö on, että geenin SLC30A8 koodaama sinkinkuljettaja on 1-tyypin diabeteksen (IDDM) autoantigeeni. Mikä relevanssi tällä on 1-tyypin diaebteksen patogeneesissa on tällä hetkellä intensiivisen selvittelyn kohteena.

Geeni SLC30A8. Sijainti Kr.8q24.11.
Geenillä on myös nimi ZNT8, sinkin kuljettaja, jäsen 8. Zinkkivirtauksen kuljettaja sinkin akkumuloimiseksi solun sisäisiin jyväsiin. Ilmenee runsaana haimassa, erityisesti Langerhansin saarekkeissa. . https://www.ncbi.nlm.nih.gov/gene/169026
(Suomennos 17.11. 2016)

d) Hormonireseptorit ja 2- tyypin diabetes


Viime aikoina on osoitettu kaksi kiertävien hormonien reseptoria, jotka saattavat olla liittyneitä 2-tyypin diabetekseen. Melatoniinihormonia syntetisoituu tryptofaani-aminohaposta ja sitä vapautuu pääasiassa aivoissa sijaitsevasta käpylisäkkeestä (corpus pineale) vuorokauden pimeänä aikana. Valo estää melatoniinin vapautumista sellaisen signaalitietä, mikä johtaa verkkokalvosta (retina) suprakervikaaliseen ganglioon.
Melatoniini säätelee vuorokausirytmiä, joka on endogeeninen (sisäsyntyinen) ja autonominen biologinen rytmi ja sitä ilmenee useimmissa soluissa ja biologisissa systeemeissä. ( engalnniksi: circadian rhytm) Ei ole mikään sattuma, että rytmi on 24- tuntinen. Kehon homeostaattisille prosesseille on tärkeää, että tämä kehon biologinen kello on synkronisoituna ja noudattaa valon ja pimeän vaihteluita. Usea perifeerinen kudos, kuten esim. maksa, on herkkää melatoniinille, ja niissä kudoksissa melatoniini rukkaa sitä kelloa. Englanniksi sitä sanotaan ”entrainment”; ja melatoniinia kutsutaan saksaksi usein ”Zeitgeber”, ajastajaksi.
Moni asia viitaa siihen, ett' metaboliset prosessit heijastavat vuorokausirytmiä (kirkadinen rytmi). Esimerkiksi insuliininerityksessä sekä in vivo ( kehossa) että isoloiduissa Langerhansin saarekkeissa on erityksen rytmiä, jonka voi tulkita vuorokausirytmiksi (circadian rythm). Tiedetään myös, että niillä ihmisillä, joilla vuorokausirytmi on häiriintynyt, on useammin aineenvaihdunnallisia häriöitä, esim. Vuorotyöläisillä.
Melatoniini valittää vaikutuksiaan kahden G-proteiiniin kytketyn kalvoreseptorin kautta, joita esiintyy myös Langerhansin saarekkeissa, todennäköisesti beetasoluissa ja jossain määrin myös alfasoluissa (Langerhansin saarekkeen beeta-solut ja A-solut)

Melatoniinireseptorit MTNR-1A ja -1B kytkeytyvät AC- entsyymiin ( adenylsyklaasiin) inibitoristen G-proteiinien kautta (Gi) ja estävät täten cAMP- signaalivälittäjän muodostumista energiapakkauksista.
Syklinen AMP eli cAMP on tärkeä sekundäärilähetti ja se vahvistaa normaalisti insuliinin vapauttamista, useassa tapauksessa inkretiinien ( suolesta erittyvien peptidien) kautta.

Niinpä useimpien tietojen perusteella melationiini estää insuliinin vapauttamista. Koska melatoniini erityy pääasiassa yöllä (”pimeähormoni”), saattaisi tämän hormonin tehtävänä olla osaltaan öisten insuliinitasojen laskeminen, mikä tapahtuu normaalisti yöaikaan.

Vuonna 2014 kolme julkaistua tutkimusta osoittivat samaan aikaan, että 2-tyypin diabetekseen liittyi reseptorigeenissä MTNR1B: esiintyvä yhden nukleotidin polymorfia (SNP) Tämä polymorfia (SNP) sijaitsee intronissa ja sitä esiintyy väestössä 30%:lla. Riskialleelin kantajilla on lisääntynyt riski ( n 11%) kehkeyttää 2-tyypin diabetes ajan mittaan. Todennäköisesti selittyy insuliinierityksen asteittaisesta vähenemisestä niillä, joilla on geenin riskivariantti. .Kun mitattiin MTNR1B mRNA Langerhansin saarekkeista ihmisdonaattoreilta, riskinkantajien mRNA-pitoisuudet osoittautuivat korkeammiksi. Se voisi tarkoittaa, että riskialleelin kantajan Langerhansin saarakkeet ovat herkempiä melatoniinin estävälle vaikutukselle insuliinin vapautumiseen. Tämä mahdollisesti selittää riskiväestön insuliinin vähentyneen vapautumisen.
  • Geeni MTNR1A. Sijainti Kr.4q35.1
 Muita nimiä MT1, MEL-1A-12.
Sijainti Hypotalamus, suprakiasmaattinen tumake. Tehtävä vuorokausirytmi.
Sijainti hypofyysi pars tubularis: tehtävä reproduktiiviset muutokset , jotka liittyvät päivän pitenemiseen.
  • Geeni MTNR1B. Sijainti Kr. 11q14.3.
Muita nimiä MT2, FGQTL2, MEL-1B-R.
Sijainti: retina ja aivo, osallistuu retinan valosta riippuviin funktioihin; osuutta melatoniinin neurobiologisissa vaikutuksissa.


Geeni ADRA2 tunnistetiin diabetesgeeninä epäsuorasti eläintutkimuksista. Geeni koodaa erästä alfa2-adrenergistä reseptoria, jonka tiedetään estävän insuliinin vapautumista. Goto-Kakizaki-rottien samasta pesueesta löydettiin eräs geenikohta (locus) joka oli kytkeytynyt hyperglykemiaan ja insuliinin erityksen defektiin (vikaan).. Alfakaksi -adrenergistä reseptoria ilmeni ylimäärin Langerhansin saarekkeissa niillä rotilla, jotlla oli häiriintynyt insuliinineritys. Jatkotutkimukset osoittivat, että vastaava polymorfia ihmisen ADRA-2- geenissä oli liittynyt alentuneeseen insuliinin vapautumiseen ja lisääntyneeseen 2-tyypin diabeteksen riskiin; liittymä paastoverensokeriin on äskettäin vahvistettu GWAS-meta-analyyseillä. Edelleen riskialleelin kantajilla osoittautui olevan lisääntynyttä alfa2-adrenergisen reseptorin ilmenemää ja häiriintynyt insuliinin vapautuminen. Eräs tästä löydöstä saatu sovellus on stressin osuus: lisääntynyt stressi, joka välittyy kohonneiden kiertävien katekoliaminien kautta, voisi johtaa 2-tyypin diabetekseen tällä mekanismilla. 

  • Geeni ADRA2, Sijainti Kr. 10q25.2.
Muita nimiä ADRAR, ZNF32, ADRA2R, ALPHA2AAR. Gprtoteiinin kytkeytynyt reseptori. 3 alatyyppiä alfa2A, alfa2B, alfa2C.

Suomennos 18.11.2016

e) Yhteenveto ja tulevaisuudenkatsaus.

Uusilla globaaleilla geneettisillä kokogenomin laajuisilla (GWAS) tutkimukslla saadut tulokset viittaavat kaiken kaikkiaan siihen, että beetasolufunktion häiriöt ovat 2-tyypin diabeteksen kehittymisessä taustana useimmissa tapauksissa. Tällä alueella on menossa dynaaminen ja produktiivinen vaihe. Tämän takia kirjoittaja ei koeta tässä kuvata kaikkia geeniliittymiä 2-tyypin diabetekseen - olevaisia tai tulevaisia-joista tässä yhteydessä väitellään. Tyypin 2 diabetekseen liittyvien geenien lista kasvaa kasvamistaan vakaasti. . Aika äskettäin julkaistiin 21 GWAS- tutkimuksen meta-analyysi .Useimmat tässä kirjassa kuvatut assosiaatiot vahvisteetiin ja tunnistettiin joukko uusia geeniliittymiä tiloissa, joissa plasman glukoosi oli koholla tai oli 2-tyypin diabetes.
Betasolun tunnistettu osuus voidaan ymmärtää siitä taustasta, että insuliinin vapautuminen asteittain vähenee niillä yksilöillä, joiden insuliinin tarve kasvaa, esim insuliiniresistenssissä, jota esiintyy lihavuudessa ja/tai fyysisessä inaktiviteetissa. Vaikkakin suurimmaksi osaksi puuttuu mekanistisia tutkimuksia näiden geenien osuudesta diabeteksen patogeneesissa
Voidaan kuitenkin hahmotella esiin tiettyjä patogeneettisia prosesseja, kun on tietoa näiden geenien normaalista merkityksestä: Näitä prosesseja ovat beetasolugeenien transkriptio, solukasvu, kehitys, kalvopotentiaali ja hormonaalinen säätyminen beetasolussa.
Lupaavista edistysaskeleista huolimatta koko joukko tietämystä vielä puuttuu. Havaitut riskivariantit ovat esiintymiseltään tavallisia ja jokainen niistä vastaa 10-20 prosentin riskinnousua. Sitäpaitsi tunnistetut geeniassosiaatiot vastaavat alle 10% 2-tyypin diabeteksen periytyvyydestä. Eikä kummastuttavaa ottaen huomioon, että tyypin 2 diabetes on polygeneettinen tauti. Tästä johtuu myös, että riskialleeleilla ennusteellisina ja diagnostisina merkitsijöinä on rajallinen käyttöalue 2-tyypin diabeteksessa. Suuri merkitys onkin sen sijaan taudin patogeneesin lisääntyneessä ymmärtämisessä. On suuri haaste löytää ne epätavalliset riskialleelit, joilla sinänsä saattaa olla paljon suurempi yksittäinen vaikutus diabeteksen kehittymiseen. Voi olla hyvinkin merkityksellistä seuloa, jotta löydettäisiin sen tyyppiset riskialleelit,
Kaiken kaikkiaan nyt ollaan uuden aikakauden kynnyksellä diabeteslääketieteessä, jossa. yksilöon sopeutettu ( yksilöllisesti koostettu, räätälöity) lääkitys ( personalized medicine) voi toteutua lähitulevaisuudessa. 
Suomennettu 18.11. 2016


(Kommentti Ajatus joka tuli mieleen kun tätä luki ja geenikarttoja katsoi:  ettei kyse ole globaalin genomin instabiliteetistä  esim. miljöötoksisten tekijöiden takia, joihin kuuluu nykymaailman ruoka-aineen inkredienssit. Pitäisikö radikaalisti vähentää valkoinen sokeri ja rasvojen  sellainen käsittely, että niistä ei ole keholle hyötyä. Genomia instabilisoi muutkin tekijät kuin ruoka).


(I) Beetasolu diabeteksen patogeneesissä ( Prof. H. Mulder, 2015)

Professori Hindrik Mulder:
YHTEENVETO beetasolun Come Backista diabeteksen patogeneesissä
  • Verensokeripitoisuus on tulosta tarkkaan  hienosäädellystä   tasapainosta ( homeostasis)   Langerhansin saarekkeiden beetasolujen erittämän insuliinihormonin vapautumisen ja sen kohdekudoksiin tekemien hormonivaikutusten kesken.
  • Uusi tutkimus. Tärkeimpiä syitä glukoosin tasapainon häiriintymiseen ja 2-tyypin diabeteksen kehkeytymiseen   on uusimman tutkimuksen mukaan beetasolujen vikatoiminta ja mahdollisesti  niiden massan alentunut määrä,
  • Tämä tietämys perustetaan ennen kaikkea potilasmateriaalista  saatuihin  laajoihiin geenianalyyseihin. On  voitu  tunnistaa joukko geenejä, jotka  vaikuttavat olevan relevantteja lähinnä  beetasolun kehittymiselle ja toiminnalle.
  • Tämä katsaus  kuvaa, mitä nykyään tiedetään näistä geneettisistä poikkeamista, joita saattaa piillä  2-tyypin diabeteksen  kehittymisen taustalla. Tämä tietämys voi johtaa parempaan ennusteseenja taudin hoitoon.
C-G. Östenson. Diabetes  typ 2.  Läkartidningen Förlag AB. 2015.
Kirjan sivuilla 23- 35 Hindrik Mulder perehdyttää beetasolun geneettisiin asioihin. Hän on professori, lääkäri, ja toimii kliinisten tieteitten laitoksella Malmön molekulaarisen aineenvaihdunnan yksikössä.
(Suomennosta)
H. Mulderin tekstistä suomennosta
Aterian jälkeen beetasolut Langerhansin saarekkeista erittävät insuliinia. Insuliinihormonin tarkoituksena on tehdä ravinnon glukoosista (polttoaineesta) saatavilla olevaa lihasten, rasvakudoksen ja maksan tärkeisiin solunsisäisiin metatabolisiin prosesseihin. Tämä saadaan aikaan lähinnä siten , että insuliini alkaa stimuloida glukoosin kuljettamista solukalvon läpi. Aterian jälkeisessä, ” post-prandiaalisessa”, anabolisessa tilanteessa tämä johtaa siihen, että samanaikaisesti stimuloituu ( polttoaineenn pitkäaikaisemmat varastoitumiset) glykogeeni- ja lipidisynteesi, muta sensijaan maksan sen hetkinen (aktuelli) glukoosin oma tuotanto ja rasvakudosten triglyseridien pilkkoutuminen sulkeutuvat - (koska valmisglukoosia tulvii näihin kudoksiin ravinnosta). Jos tämä insuliinivälitteinen ( looginen) säätely häiriintyy, nousee (rekyylinä) sokeripitoisuus kiertävässä veressä sekä aterian jälkeen että (lopulta) myös paastosokerikin nousee: tyypin 2- diabetes kehittyy.
Periaatteessa on kuviteltavissa, että sekä häiriintynyt insuliinin erittyminen vereen että hormonin riittämätön vaikutus kohdekudoksissa molemmat seikat voivat johtaa kohonneeseen verensokeripitoisuuteen.
Diabetestutkimuksen alalla alettiin kohdistaa vahvaa huomiota beetasolujen vikatoimintaan sen jälkeen, kun Minkowski 1800-luvun lopussa oli havainnut haiman keskeisen osuuden verensokerin säätelyssä ja Banting et al. 1920-luvulla oli eristänyt insuliinia rauhasesta. Tämä suuntaus muuttui radikaalisti 1960 luvulla, kun Yaloe et al. (RIA-menetelmän kehittäjä) pystyi yllättäen osoittamaan myöhäis-iän diabeetikoilla veressä kiertäviä korkeita insuliinipitoisuuksia.
Ilmeistä oli siis, että esiintyi eri muotoisia diabetestauteja. Tässä jälkimmäisessä tyypissä ainakin alkuvaiheissa ilmeni hyperinsulinemiaa ja siitä puuttui beetasolujen autoimmuunisen tuhon merkit ja jonkin aikaa tätä muotoa kutsuttiin ei-insuliinista riippuvaksi diabetekseksi (NIDDM, non-insulin dependent diabetes) ( Vertaa: insuliinia vaativan diabeteksen nimi = IDDM). Alkoi uusi ajanjakso ja siinä kohdistettiin vahva huomio perifeeristen kudosten insuliiniherkkyyden katoamiseen ja tilaa alettiin kutsua nimellä insuliinresitenssi.

Insuliiniherkkyys ja insuliiniresistenssi

Nykyään tiedämme, että insuliiniherkkyyden alentuma ja vähitellen kehittyvä insuliiniresistenssi liittyvät hyvin voimakkaasti ylipainoon ja fyysiseen inaktiivisuuteen. Kuitenkaan kaikille ei kehity niistä seikoista mitään 2-tyypin diabetesta. Siitä selviää, että useimpien yksilöitten beetasoluilla on hyvin pätevää kykyä kompensoida insuliiniresistenssiä lisäämällä insuliinin vapauttamista vereen.

 Ja vasta kun tämä beetasolujen kompensaatiokyky alkaa luhistua, verensokeripitoisuudet eivät enää ole kontrolloitavissa. Hyperglykemia kehittyy asteittain ja lopulta kun paastosokeripitoisuudet alkavat olla 7 mmol/L on 2-tyypin diabetes mellitus jo faktaa.

Insuliiniherkkyyttä ja insuliinihormonin vapautumista tutkittaessa sairaudenkehityksen ajalta havaitsee, että insuliiniherkkyys pysyttelee jokseenkin muuttumattomana, tosin matalana kun taas kyky vapauttaa insuliinia lakkaa. Tämä voidaan osoittaa myös siinä, että alkuvaiheen 2-tyypin diabetesta voidaan hallita konservatiivisella hoidolla (painoa vähentämällä ja fyysisellä aktiivisuudella) sekä metformin- lääkkeellä ja tällöin on tarkoituksena lisätä insuliiniherkkyyttä.
Vähitellen kuitenkin tarvitsee stimuloida insuliinin vapauttamista beetasolusta, esimerkiksi sulfonylurea-lääkkeellä tai inkretiiniin perustuvalla terapialla.
Viimeksimainittu on uusia kehiteltyjä hoitoperiaatteita, jotka perrustuvat suolesta vapautuviin hormoneihin (inkretiinit; glukakoninkaltainen peptidi-1 eli GLP-1 ja gastrinen insulinotrooppinen peptidi eli GIP). Ruoan syömisen jälkeen nämä vahvistavat glukoosin vaikutusta insuliinin vapauttamiseen.
GLP_1-analogit tai aineet, jotka blokeeraavat (estävät) inkretiinien pilkkoutumista, käyttävät hyväkseen tätä fysiologista mekanismia ja (epäsuorasti) vahvistavat glukoosin stimuloimaa insuliinin vapauttamisita ilman hypoglykemian riskiiä.
Lopulta endogeenisen insuliinin vapautumisenkin muututtua riittämättömäksi, täytyy useissa tapauksissa käyttää substituutiohoitoa eli antaa insuliinin, jotta saadaan verensokeri hallintaan.
Vahvaa yksimielisyyttä beetasolujen osuudesta. 
 
Tieteellisen tutkimuksen alueella on tänä päivänä vahvaa yksimielisyyttä siitä, että beetasolulla on keskeinen patogeneettinen osuus 2-tyypin diabeteksen kehittymisessä. On ollut haastavaa hahmottaa, missä näitä patogeneettisiä prosesseja tapahtuu ja mitä ne ovat. Kauankin jo on ollut ilmeistä, että taudilla on jotain geneettistä taustaa - identtisillä kaksosilla useissa tutkimuksissa taustan yhtenevyys on 90 %: sta.

 1990-luvun aikana geenitutkimus osoitti monogeenistä etiopatogeneesiä pienellä potilasryhmällä, joilla periytyi dominantisti 2-tyypin diabeteksen taudinkuvaa kliinisesti muistuttava tauti, aikuistuvassa nuoressa alkava diabetes MODY, maturity-onset diabetes. Suurella enemmistöllä 2-tyypin diabetesta potevia ilmenee kuitenkin polygeneettistä perimää ja monitekijäistä piirrettä.

 Selkotekstinä tämä tarkoittaa, että useat geenit, niin sairautta kehkeyttävät kuin siltä suojaavat, omaavat tärkeää osaa ja samalla miljöötekijöillä on merkitystä.
Mitä nämä geenit ovat? (Jatkuu...)
Suomennosta 17.11. 2016


onsdag 16 november 2016

Ruotsin kansalliset suositukset (Nationella riktlinjer) diabeteksen hoitoon. Indikaattorit

https://www.diabetes.se/diabetes/diabetesvard/nationella-riktlinjer/riktlinjer-for-diabetesvarden/


Förteckning över indikatorerna för diabetesvård

Socialstyrelsen har tagit fram följande indikatorer för diabetesvård:

Övergripande indikatorer för diabetesvård

Indikator A1 Dödlighet i hjärt- och kärlsjukdom
Indikator A2 Amputation ovan fotled
Indikator A3 Patienter med diabetesnefropati som påbörjat aktiv uremivård
Indikator A4 Dödföddhet och neonatal dödlighet bland enkelbörder
Indikator A5 Allvarliga fosterskador
indikator A6 *Förekomst av proliferativ diabetesretinopati
Indikator A7  Laktacidos vid metforminbehandling

Riktlinjespecifika indikatorer för diabetesvård

Indikator B1 HbA1c < 52 mmol/mol
Indikator B2 HbA1c > 70 mmol/mol
Indikator B3 Blodtryck <  140/85 mm Hg
Indikator B4 Statinbehandling vid diabetes1  *
Indikator B5 Uppmätt makroalbuminuri
Indikator C1 Fotundersökning
Indikator C2 Ögonbottenundersökning
Indikator C3 Mätning av albuminutsöndring i urinen
Indikator D1 Utövande av fysisk aktivitet
Indikator D2 Icke-rökare bland personer med diabetes
*I de nationella riktlinjerna från 2015 heter denna indikator
Statinbehandling vid diabetes efter graden av
risk för hjärt- och kärlsjukdom.

Strukturindikatorer för diabetesvård

Indikator E1  Diabetesutbildad sjuksköterska
Indikator E2  Gruppbaserade utbildningsprogram givna med stöd av personal med
ämneskompetens och pedagogisk kompetens

Patientrapporterat utfall

Indikator F1*  Hur jag mår, hanterar min diabetes och hur diabetes påverkar mig och mitt liv

Indikator F2*  Tillgång till och erfarenheter av hjälp och stöd från diabetesvården
* Utvecklingsindikator


NATIONELLA RIKTLINJER UTVÄRDERING 2015 – DIABETESVÅRD SOCIALSTYRELSE


söndag 13 november 2016

Iltalehti kertoo Suomen diabetestilanteesta 13.11. 2016

Diabetes lisääntyy hurjaa vauhtia - vaivaa joka kymmenettä nelikymppistä
Sunnuntai 13.11.2016 klo 07.00
Erikoiskorvattaviin diabeteslääkkeisiin oikeutettujen, yli 40-vuotiaiden suomalaisten määrä on kasvanut 82 prosenttia kymmenessä vuodessa. Diabetes on lisääntynyt kaikissa ikäryhmissä.
  • Diabetekseen sairastuneiden suomalaisten määrä on kasvanut kymmenessä vuodessa huimasti.
  • Pääasiassa kyse on tyypin 2 diabeteksen lisääntymisestä, jota olisi mahdollista jarruttaa muun muassa elintapamuutoksilla.
  • Jos kasvutahti jatkuu samana, diabeteksen aiheuttamista kuluista kasvaisi liian suuri lasku yhteiskunnalle.


Diabeetikko voi joutua mittaamaan verensokeria useita kertoja päivässä. (MOSTPHOTOS)
LUE MYÖS
Diabetes yleistyy hyytävällä vauhdilla: 20 vuodessa joka toisella suomalaisella voi olla se

KAHTA TYYPPIÄ
Tyypin 1 diabeteksessa elintoiminnoille välttämätöntä insuliinia ei erity, sillä sitä tuottavat haiman saarekesolut ovat tuhoutuneet. Se vaatii elinikäistä insuliinipuutoksen korvaushoitoa, sillä ilman insuliinia diabeetikko joutuu hengenvaaraan.
Tyypin 1 diabetekseen sairastutaan tavallisesti alle 40-vuotiaana. Ehkäisykeinoja nuoruustyypin diabetekseen ei tunneta.
Tyypin 2 diabeteksessa haima tuottaa insuliinia, mutta se vaikuttaa heikosti tai sitten sitä ei ole tarpeeseen nähden riittävästi. Aikuistyypin diabetekseksi kutsuttu häiriö kehittyy tavallisesti hitaasti ja puhkeaa yli 40-vuotiailla.
Tyypin 2 diabetes on usein oireeton ja sen toteaminen voikin tapahtua sattumalta. Esimerkiksi väsymys erityisesti aterioiden jälkeen, jalkasäryt, lihaskouristelut ja uupumus, johon lepääminen ei auta, voivat viitata aikuistyypin diabetekseen.
Taipumus sairastua tyypin 2 diabetekseen on perinnöllinen, mutta elintavat voivat vaikuttaa sairauden puhkeamiseen. Aikuistyypin diabeteksessa elintavoilla onkin tärkeä rooli lääkehoidon rinnalla.
Maanantaina 14. marraskuuta vietetään maailman diabetespäivää, joka koskettaa yhä useampaa. Terveyden ja Hyvinvoinnin laitoksen tilasto- ja indikaattoripankki Sotkanetin mukaan vuoden 2015 lopussa 314 001 suomalaista oli oikeutettu taudin hoitoon tarkoitettuihin lääkkeisiin.
Diabeteslääkkeisiin erikoistunut Novo Nordisk -lääkeyhtiö myös arvioi, että noin 200 000 henkilöä sairastaa tautia tietämättään. Tämä nostaa suomalaisten diabeetikkojen yhteismäärän puoleen miljoonaan, yhtiö huomauttaa tiedotteessaan.
Kehitys hälyttävää
Lääkeyhtiö tarkasteli diabeteksen esiintymistä Sotkanetin tietojen pohjalta. Tulokset puhuvat yhtiön mukaan karua kieltä sairauden yleistymisestä.
Yli 65-vuotiaiden keskuudessa diabetesta sairastavien määrä on kymmenessä vuodessa noussut 99,7 prosenttia eli käytännössä kaksinkertaistunut. 40-64-vuotiaiden joukossa kasvua on tapahtunut 61 prosenttia.
Vertailu ei erittele tyypin 1 ja 2 diabetesta sairastavia toisistaan, mutta Novo Nordiskin diabeteslääkäri Tero Saukkosen mukaan kyse on käytännössä jälkimmäisen lisääntymisestä. Myös tyypin 1 diabetesta sairastavien määrä on kohonnut, mutta kasvu on melko stabiilia ja arviolta alle kymmenen prosentin luokkaa.
Diabeteksen 2-tyyppiin sairastuneiden määrä on sen sijaan voimakkaassa kasvussa, mitä Saukkonen pitää hälyttävänä. Suomi ei kuitenkaan ole yksin asian kanssa, vaan kyseessä on maailmanlaajuinen ilmiö, joka vaivaa varsinkin urbaaneissa oloissa asuvia.
- Kaupunkiympäristö ei tue terveellisiä elämäntapoja, Saukkonen kertoo. Tämä johtuu siitä, että hyöty- ja arkiliikunnan määrä voi helposti jäädä vähiin, sillä kaupunkirakentaminen ei välttämättä kannusta ihmisiä pyöräilemään tai kävelemään.
Kaupunkilaisen tulee usein myös nähdä vaivaa kuntoilun suhteen. Liikuntasuoritus vaatii usein esimerkiksi kuntosalille tai uimahalliin siirtymistä, mikä voi vähentää kuntoilukertojen määrää.
Kaupunkisuunnittelun merkityksen lisäksi Saukkonen painottaa myös ympäröivän kulttuurin merkitystä. Henkilöä tulisi kannustaa terveellisiin elintapoihin lapsuudesta lähtien.
- Vaikkapa opettamalla, että asioita hoitaakseen ei aina tarvitse lähteä jonnekin bussilla, hän kertoo esimerkkinä.
Elintavoilla merkitystä

Hyötyliikunta on oiva keino pitää painoa kurissa, mikä voi taas auttaa tyypin 2 diabeteksen hoidossa. (MOSTPHOTOS)
Diabeteslääkärin mukaan terveellisten elintapojen noudattaminen on saattanut polarisoitua. Osa suomalaisista pitää huolta kunnostaan liikkumalla ja syömällä terveellisesti. Kaikilla ei kuitenkaan ole varaa esimerkiksi erilaisiin liikuntamaksuihin tai -välineisiin. Liikkumattomuus voi siis olla taloudellinen kysymys.
Varallisuus voi vaikuttaa myös ravinnon laatuun, ja diabetekseen sairastuneiden huima nousu voidaan osittain selittää ylipainon lisääntymisellä. Esimerkiksi einekset ovat edullisia, mutta eivät välttämättä terveellisiä.
- Tämä tosin on laajempi yhteiskunnallinen kysymys, Saukkonen huomauttaa.
Oma osansa asiassa on myös pikaruokakulttuurilla, jonka vuoksi epäterveellisen ruoan kuluttaminen on paitsi edullista, myös vaivatonta, lääkäri arvelee.
Huolestuttavat luvut
Vaikka tyypin 2 diabeteksen lisääntyminen selittyy osittain väestön vanhenemisella ja sillä, että sairaus tunnistetaan aiempaa aikaisemmin, suunta on huolestuttava.
- Luvut kertovat siitä, että ennaltaehkäisyä tarvitaan. Se on oleellinen viesti, Saukkonen tiivistää.
Jos suunta jatkuu samanlaisena, yhteiskunta ei tule kestämään siitä koituvia kustannuksia. Suoraan sairauden hoitoon liittyvien kulujen lisäksi diabetes aiheuttaa epäsuoria kustannuksia muun muassa sydän- ja verisuonitautien hoidon muodossa. Eläköitymiset ja niiden aiheuttamat menetetyt työvuodet vaikuttavat nekin kansantalouteen.
- Lasku olisi yhteiskunnalle kerta kaikkiaan liian suuri kannettavaksi.
Kansanterveyden ja -talouden lisäksi diabetes vaikuttaa luonnollisesti myös yksilön elämänlaatuun, diabeteslääkäri muistuttaa. Huima kasvu tulee siis pystyä taittamaan.
Tieto tärkeintä
Tyypin 2 diabeteksen hoidossa elintapaohjauksella on keskeinen rooli lääkehoidon rinnalla. Vaikka taipumus sairastua tyypin 2 diabetekseen on vahvasti perinnöllinen, elintavat vaikuttavat myös sairauden puhkeamiseen, joko estäen sen tai viivyttämällä sitä. Tämän vuoksi Saukkonen toivookin, että Suomessa mietittäisiin tarkemmin sitä, kuinka diabetestietoutta voitaisiin edistää.
- Ettei sairastumisen tunnistaminen ja elämäntapojen huomioiminen jäisi kiinni siitä, ettei tietoa ollut saatavilla.
2016

Oma kommenttini. Olen monessa kohtaa blogeissani (fytiini ym)   kirjoittanut, että epäilen fosfaattitasapainolla olevan merkitystä: Mutta tätä ei ole katsottu ravinnosta. On pyritty hajoittamaan IP6-muotoinen fosfaatti (fytiini) hiivalla  pienempiin kokoihin ja vapaaksi epäorgaaniseksi fosfaatiksi. Hiivaa käytetään  leipomiseen, joten leivissä ei saa IP6-muotoista fytiiniå, jolle on tietty tarpeensa.  Lisäaineissa tulee epäorgaanista fosfaattia.
Jos voitaisiin vähentää hiivalla fermentoitujen viljatuotteiden osuutta ja lisätä sen sijaan puurojen ja myslin ja jyvien ja palkohedelmien ( pähkinät, mantelit) osuutta ja valmistaa  leipä siten, että sen antama epäorg. fosfaatin rasitus ei muodostu maksimaaliseksi, saataneen hieman jarruvaikutusta  metabolisen oireyhtymän muodostumiseen, jonka yksi ilmiö on insuliiniresistenssi ja lihavuus  (BMI yli 27) ja painoinstabiliteetti.Mutta tiedän, että jos vain sanoo tällaisen ajatuksen, leipää ja fermentoituja viljatuotteita käytytetään kaksinveroin enemmän, joten  pidemmittä puheitta piste. Makeissa leivonnaisissa taas käytettäessä  leivinjauhetta, tulee lisäaineita, joissa on epäorgaanisia fofaatteja.

Israelissa on  pääsiäisen aikana Mooseksen säätämä  happamaton leipä viikon ajan, mutta käytännössä kansa syö happamatonta  runsaammin ainakin helluntaihin asti, joten siitä tulee 50 päivää vähempää
Sellainen toistuva  happamattoman leivän  ja paahdettujen jyvien makuun tottuminen  herkistää makutottumuksiakin ja samalla  fosfaattirasitusta kehossa ja vähitellen  kokee miellyttävänä happamattoman leivän. 13.11. 2016